Вітамін PP 2/130, 472; 3/103, 104; 5/414; 7/514, гл. Нікацінавая кіслата

Беларуская Савецкая Энцыклапедыя (1969—76, паказальнікі; правапіс да 2008 г., часткова)

ВЫДЗЯЛЕ́ННЕ, экскрэцыя,

вывядзенне з арганізма канчатковых і прамежкавых прадуктаў метабалізму, чужародных, таксічных і залішніх рэчываў, вады, солей, газаў; частка абмену рэчываў. Забяспечвае аптымальны склад унутр. асяроддзя (гамеастаз) і нармальную жыццядзейнасць арганізма. У працэсе выдзялення ў пазваночных удзельнічаюць ныркі, стрававальна-кішачны тракт, лёгкія, шчэлепы, скура, слізістыя абалонкі, плацэнта (гл. Выдзяляльная сістэма). Асновай механізмаў выдзялення ў розных органах з’яўляюцца працэсы пераходу прадуктаў абмену рэчываў праз клетачныя мембраны з вобласці з больш высокай іх канцэнтрацыяй у вобласць з больш нізкай канцэнтрацыяй. У выдзяленні адрозніваюць 3 групы з’яў: выдзяленне вуглекіслаты ў знешняе асяроддзе ў газападобнай форме (у наземных жывёл); выдзяленне канчатковых прадуктаў азоцістага абмену (аміяк, мачавіна, мачавая кіслата, гуанін) і чужародных рэчываў, якія ўсмоктваюцца; рэгуляцыя асматычнага ціску ўнутр. асяроддзя арганізма праз выдзяленне вады і солей. У норме выдзяленне прадуктаў абмену прапарцыянальнае інтэнсіўнасці іх утварэння. Паміж органамі выдзялення існуюць функцыян. і рэгулятарныя ўзаемасувязі. У раслін адрозніваюць актыўнае выдзяленне — спецыялізаванымі залозамі або ўсёй паверхняй клетак і пасіўнае выдзяленне — змыванне і вышчалочванне ападкамі. Парушэнне выдзялення вядзе да павелічэння канцэнтрацыі рэчываў, якія выдзяляюцца ва ўсіх клетках арганізма, і абумоўлівае парушэнне іх нармальнага функцыянавання.

А.​С.​Леанцюк.

т. 4, с. 306

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

ПІРО́ЛІЗ ДРАЎНІ́НЫ, сухая перагонка драўніны,

тэрмічнае (пры награванні да 450 °C) раскладанне драўніны без доступу паветра. Асн. прадукты П.д. — драўнінная смала, воцатная кіслата, драўняны вугаль. Адзін з першых працэсаў хім. тэхналогіі, вядомы з 12 ст. (смалакурэнне, вуглевыпальванне). У 19 ст. пачалося прамысл. выкарыстанне П.д. пераважна для атрымання воцатнай к-ты.

Пры П.д. адбываецца тэрмадэструкцыя геміцэлюлоз (пры 200—260 °C), цэлюлозы (240—350 °C), лігніну (250—400 °C). Выхад прадуктаў залежыць ад скорасці награвання і канчатковай т-ры працэсу, а таксама пароды і вільготнасці драўніны. З 1 м³ драўніны атрымліваюць (у сярэднім) 140—180 кг драўнянага вугалю, 280—400 кг вадкага дыстыляту, з якога вылучаюць драўнінную смалу і воцатную к-ту, і 80—100 кг газападобных прадуктаў (некандэнсавальных гаручых газаў; цеплата згарання 3—15 МДж/м³). Асн. стадыі тэхнал. схемы П.д.: раздрабненне сыравіны на кавалкі, высушванне драўніны (да вільготнасці не вышэй за 15%), піроліз, ахаладжэнне вугалю і яго стабілізацыя, кандэнсаванне пары лятучых прадуктаў. Звычайна П.д. ажыццяўляюць у верт. апаратах (рэтортах) бесперапыннага дзеяння з унутр. цыркуляцыяй газападобнага цепланосьбіта. Гл. таксама Лесахімічная прамысловасць.

Я.​Г.​Міляшкевіч.

т. 12, с. 382

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

РЭГУЛЯ́ТАРЫ РО́СТУ РАСЛІ́Н,

прыродныя і сінт. арганічныя рэчывы, здольныя стымуляваць або прыгнятаць рост і развіццё раслін. Выкарыстоўваюць у сельскай гаспадарцы для паскарэння або запавольвання росту, цвіцення, кушчэння, выспявання садавіны і гародніны, для паляпшэння якасці пладоў, рэгулявання перыяду спакою, павышэння ўстойлівасці раслін да замаразкаў, засухі і інш.

Прыродныя Р.р.р. — фітагармоны ў невял. колькасці ўтвараюць самі расліны. Да іх адносяцца аўксіны, гіберэліны, цытакініны, брасінастэроіды — стымулятары росту, абсцызавая кіслата, эндагенны этылен — інгібітары росту, а таксама т.зв. другасныя роставыя рэчывы: флаваноіды, алкалоіды, тэрпеноіды. Многія фітагармоны атрымліваюць у прамысл, маштабах метадам біятэхналогіі. Сінт. Р.р.р. класіфікуюць паводле іх суадносін з фітагармонамі: аналагі аўксінаў і цытакінінаў, антыаўксіны і антаганісты цытакінінаў, інгібітары біясінтэзу гіберэлінаў (гл. Рэтарданты) і інш. Найб. пашыраныя сінт. рэгулятары — арыл- і арылаксіаліфатычныя к-ты, оніевыя солі (гл. Оніевыя злучэнні), гетэрацыклічныя злучэнні (пераважна вытворныя індолу, пірыдзіну, піразолу, пірымідзіну). У залежнасці ад канцэнтрацыі, тэрмінаў апрацоўкі с.-г. культур многія Р.р.р. могуць дзейнічаць як гербіцыды, дэфаліянты, дэсіканты.

Літ.:

Калинин Ф.Л. Биологически активные вещества в растениеводстве. Киев, 1984;

Кефели В.И., Прусакова Л.Д. Химические регуляторы растений. М., 1985.

Я.​Г.​Міляшкевіч.

т. 13, с. 550

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

ГЕАМЕТРЫ́ЧНАЯ ІЗАМЕ́РЫЯ, цыс-транс-ізамерыя,

з’ява існавання малекул рознай прасторавай будовы пры аднолькавай паслядоўнасці і тыпе хім. сувязей у злучэнні; від прасторавай ізамерыі. З’яву геаметрычнай ізаметрыі растлумачыў Я.Х. вант Гоф (1874).

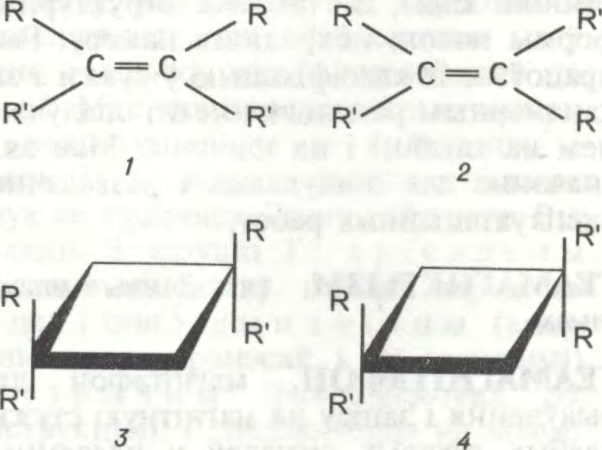
Геаметрычная ізаметрыя ўласцівая злучэнням з падвойнымі сувязямі (найчасцей C=C і C=N), вакол якіх немагчыма свабоднае вярчэнне атамаў, і цыклічным злучэнням з малымі (неараматычнымі) цыкламі. Магчыма, калі атам вугляроду пры падвойнай сувязі ці ў цыкле мае неаднолькавыя замяшчальнікі (групоўку атамаў тыпу RR′C = CRR′), якія па-рознаму размешчаны адносна плоскасці падвойнай сувязі (гл. Кратныя сувязі) ці кольца ў цыклічных злучэннях. Існуюць 2 формы геам. ізамераў: цыс-ізамеры — аднолькавыя замяшчальнікі знаходзяцца па адзін бок ад плоскасці падвойнай сувязі (формула 1) ці кольца (формула 3), транс-ізамеры — па розныя бакі (формулы 2, 4). У цыклічных злучэннях адначасова з геаметрычнай ізаметрыяй магчыма і аптычная ізамерыя. Геам. ізамеры маюць розныя фіз. і хім. ўласцівасці. Цыс-ізамеры даволі лёгка (пад уздзеяннем святла, цяпла, хім. рэагентаў) пераходзяць у больш устойлівыя транс-ізамеры, напр., малеінавая кіслата. Геаметрычная ізамерыя ўласцівая і палімерам, напр., гутаперча (транс-поліізапрэн), каўчук натуральны (цыс-полііэалрэн).

Літ.:

Потапов В.М. Стереохимия. 2 изд. М., 1988.

М.​Р.​Пракапчук.

Геаметрычная ізамерыя: 1, 3 — цыс-ізамеры; 2, 4 — транс-ізамеры.

т. 5, с. 120

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

МАЧАВІ́НА, карбамід,

амід вугальнай к-ты (NH2)2CO; канчатковы прадукт бялковага абмену ў большасці пазваночных жывёл і чалавека. Біясінтэз М. адбываецца ў печані (гл. Арніцінавы цыкл). З арганізма выводзіцца з мачой. М. адкрыта ў 1773 франц. хімікам І.​Руэлем. Яе хім. састаў устанавіў у 1824 англ. хімік У.​Праўт; сінтэзаваў у 1828 Ф.Вёлер.

Бясколернае крышт. рэчыва. Не мае паху, tпл 132,7 °C, шчыльн. 1330 кг/м³ (25 °C). Раствараецца ў вадзе, спірце, вадкім аміяку. Хімічна актыўнае злучэнне: утварае клатраты [напр., з пераксідам вадароду CO(NH2)2∙H2O2]; узаемадзейнічае са спіртамі. карбонавымі к-тамі і іх ангідрыдамі, з двухасноўнымі к-тамі (гл. Барбітуравая кіслата), анілінам, гідразінам і інш. арган. рэчывамі. Лёгка кандэнсуецца з фармальдэгідам (гл. Амінаальдэгідныя смолы). У прам-сці атрымліваюць з аміяку і дыаксіду вугляроду пры т-ры 180—230 °C пад ціскам (12—25 МПа). Выкарыстоўваюць для атрымання мачавіна-фармальдэгідных смол, фарбавальнікаў, снатворных сродкаў (веранал, люмінал і інш.), для дэпарафінізацыі нафты, у сельскай гаспадарцы як канцэнтраванае азотнае ўгнаенне (мае 46 % азоту) пад розныя с.-г. культуры на любых глебах, а таксама як заменнік пратэіну ў кармах для жвачных жывёл.

А.​І.​Валожын.

т. 10, с. 234

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

БЯЛКО́ВЫ АБМЕ́Н,

сукупнасць хім. пераўтварэнняў бялкоў і амінакіслот у жывых арганізмаў; важнейшая частка абмену рэчываў (у спалучэнні з пераўтварэннямі інш. азотазмяшчальных рэчываў утварае сістэму азоцістага абмену). Два ўзаемазвязаныя бакі бялковага абмену ў арганізме — распад (катабалізм) і біясінтэз (анабалізм) бялкоў. Першая стадыя аднаўлення бялкоў — іх гідроліз да амінакіслот пры дапамозе ферментаў катэпсінаў (тканкавых пратэіназаў), што лакалізаваны пераважна ў лізасомах (дзейнічаюць у кіслым асяроддзі). Амінакіслоты ўтвараюцца і пры гідролізе (ператраўленні) харч. бялкоў пад уздзеяннем пратэалітычных ферментаў (пратэазаў) страўнікава-кішачнага тракту (пепсін, трыпсін, хіматрыпсін, эластаза, экзапептыдазы), якія ўсмоктваюцца ў ім і трапляюць у клетку. Толькі такім шляхам паступаюць у арганізм неабходныя яму незаменныя амінакіслоты. У клетках амінакіслоты ўтвараюць амінакіслотны фонд клеткі, выкарыстоўваюцца на сінтэз пептыдаў, бялкоў, пурынаў, пірымідзінаў, гемапратэінаў, вугляводаў, ліпідаў, нізкамалекулярных гармонаў і інш. рэчываў, уступаюць у асн. агульныя рэакцыі абмену: пераамініраванне, дэзамініраванне і дэкарбаксіліраванне.

Пры пераамініраванні (трансмініраванні) α-амінагрупа адшчапляецца ад L.-амінакіслот і пераносіцца ў асноўным на α-вуглярод α-кетаглутаравай кіслаты. Гэта рэакцыя мае асабліва вял. значэнне пры біясінтэзе амінакіслот у раслінах: нітраты і нітрыты, што трапляюць у расліны з глебы, аднаўляюцца з утварэннем аміяку, які звязваецца з α-кетаглутаравай кіслатой; утвараецца глутамінавая кіслата. Амінагрупа гэтай кіслаты ў працэсе рэакцыі пераносіцца на кетакіслоты з утварэннем інш. амінакіслот. Пры дэзамініраванні адбываецца распад амінакіслот з выдзяленнем аміяку. Найб. значэнне ў арганізме жывёл і чалавека мае акісляльнае дэзамініраванне, пры якім утвараецца кетакіслата і аміяк. Утвораныя пры пераамініраванні і акісляльным дэзамініраванні α-кетакіслоты здольныя аднаўляцца з утварэннем амінакіслот, якія ў працэсе катабалізму могуць выкарыстоўвацца на сінтэз глюкозы і ацэтонавых цел. Пры дэкарбаксіліраванні амінакіслот вылучаецца вуглякіслы газ (CO2) і ўтвараюцца аміны, а пры дэкарбаксіліраванні араматычных амінакіслот — біягенныя аміны (трыптамін, сератанін, гістамін, γ-амінамасляная кіслата). Аміяк, што ўтвараецца пры дэзамініраванні амінакіслот і амінаў, таксічны для арганізма. Абясшкоджванне яго адбываецца пры аднаўленчым амініраванні, у рэакцыях сінтэзу глутаміну і аспаргіну, у цыкле сінтэзу мачавіны ў печані (у чалавека, млекакормячых і некат. інш. жывёл) ці мачавой кіслаты (у птушак, рэптылій, насякомых). У чалавека і жывёл мачавіна выдаляецца з арганізма з мачой, часткова ў выглядзе аманійных соляў, у раслін магчыма паўторнае яе ўключэнне ў працэсы сінтэзу бялку. Збалансаваны па паступленні (у т. л. ў складзе незаменных амінакіслот) і выдаленні азоту, бялковы абмен вызначае фарміраванне ў арганізме стану азоцістай раўнавагі, калі патрэба яго ў бялках можа быць мінімальнай (гл. Бялковы мінімум). Рэгулюецца бялковы абмен ў чалавека і жывёл ферментамі, гармонамі пры ўдзеле нерв. сістэмы (гл. Нейрагумаральная рэгуляцыя, Гарманальная рэгуляцыя).

Літ.:

Строев Е.А. Биологическая химия. М., 1986;

Николаев А.Я. Биологическая химия. М., 1989;

Березов Т.Т., Коровкин Б.Ф. Биологическая химия. 2 изд. М., 1990.

В.​К.​Кухта.

т. 3, с. 398

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

АНАБАЛІ́ЗМ (ад грэч. anabolē уздым),

асіміляцыя, сукупнасць хім. працэсаў у жывым арганізме, якія забяспечваюць біял. сінтэз патрэбных для жыцця складаных рэчываў (бялкоў, поліцукрыдаў, тлушчаў, нуклеінавых кіслот і інш.) з больш простых. Накіраваны на ўтварэнне і абнаўленне структурных частак клетак і тканак. Непарыўна звязаны з катабалізмам (процілеглы працэс) і ўтварае з ім хім. аснову прамежкавага абмену рэчываў і абмену энергіі (забяспечвае яе назапашванне) у арганізме. Аўтатрофныя арганізмы (зялёныя расліны і некаторыя грыбы) здольныя ажыццяўляць першасны сінтэз арган. злучэнняў з CO2 з выкарыстаннем вонкавых крыніц энергіі (сонечнага святла, акіслення неарган. рэчываў), гетэратрофныя — толькі за кошт энергіі, якая вызваляецца ў працэсах катабалізму. Колькасць зыходных кампанентаў для біясінтэзу абмежаваная (глюкоза, рыбоза, амінакіслоты, піравінаградная кіслата, гліцэрына, ацэтылкаэнзім анабалізму і інш.). Як правіла, анабалізм забяспечваецца спецыфічным наборам ферментаў і ўключае шэраг аднаўленчых этапаў. У працэсе анабалізму кожная клетка сінтэзуе характэрныя для яе бялкі, вугляводы, тлушчы і інш. злучэнні (напр., мышачныя клеткі сінтэзуюць уласны глікаген і не скарыстоўваюць глікаген печані). У высокаарганізаваных арганізмаў у рэгуляцыі анабалізму на ўзроўні клетачнага абмену рэчываў акрамя ферментаў удзельнічаюць гармоны і інш. біял. актыўныя рэчывы, нерв. сістэма (гл. Нейрагумаральная рэгуляцыя). Многія прыродныя і сінтэтычныя рэчывы (анаболікі) здольныя павышаць узровень анабалізму, іх выкарыстоўваюць для штучнага нарошчвання мышачнай масы цела ў спорце (праблема допінг-кантролю), таксама як лек. сродкі ў тэрапіі хвароб абмену рэчываў.

т. 1, с. 331

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

КАТАБАЛІ́ЗМ (ад грэч. katabolē скіданне, разбурэнне),

дысіміляцыя, сукупнасць хім. працэсаў у жывым арганізме, якія забяспечваюць раскладанне ў ім уласных і тых, што паступілі з ежай (кормам), складаных арган. рэчываў на больш простыя. Непарыўна звязаны з анабалізмам і абменам энергіі ў арганізме. Суправаджаецца паступовым вызваленнем назапашанай у хім. сувязях буйных малекул энергіі, якая выкарыстоўваецца ў арганізме на сінтэз новых арган. злучэнняў, забеспячэнне працэсаў жыццядзейнасці (скарачэнне мышцаў, правядзенне нерв. імпульсаў, падтрыманне т-ры пела, асматычнага ціску і інш.) або назапашваецца ў форме багатых энергіяй фасфатных сувязей, пераважна адэназінфосфарнай кіслаты (гл. Акісленне біялагічнае). Цэнтр. месца ў К. займаюць гліколіз, браджэнне і працэс дыхання. Асн. канчатковыя яго прадукты — вуглякіслы газ, вада, аміяк, мачавіна, малочная кіслата. Як правіла, К. забяспечваецца спецыфічным наборам ферментаў. Шэраг прамежкавых прадуктаў, якія пры гэтым утвараюцца (напр. ацэтылкаэнзім А), звязваюць К. і анабалізм у адзінае цэлае, абумоўліваюць іх узаемазалежнасць і ўзаемаабумоўленасць. У высокаарганізаваных арганізмаў у рэгуляцыі К. акрамя ферментаў удзельнічаюць гармоны і інш. біялагічна актыўныя злучэнні, нерв. сістэма (гл. Нейрагумаральная рэгуляцыя). Паталагічнае павышэнне ўзроўню К. выяўляецца схудненнем, дыстрафіяй і інш. знешнімі прыкметамі і станам арганізма. Многія прыродныя і сінтэтычныя рэчывы, здольныя павышаць ці паніжаць інтэнсіўнасць К., выкарыстоўваюць як лек. сродкі ў тэрапіі хвароб абмену рэчываў.

Літ.:

Гл. пры арт. Абмен рэчываў.

Я.​В.​Малашэвіч.

т. 8, с. 168

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)

БІЯЭЛЕКТРЫ́ЧНЫЯ ПАТЭНЦЫЯ́ЛЫ, біяпатэнцыялы,

электрычныя патэнцыялы, якія ўзнікаюць у жывых тканках і асобных клетках чалавека, жывёл і раслін; паказчык біяэл. актыўнасці; важнейшыя кампаненты працэсаў узбуджэння і тармажэння. Вызначаюцца іх рознасцю паміж двума пунктамі жывой тканкі. Асн. віды: мембранныя, або біяэлектрычныя патэнцыялы спакою, дзеяння, постсінаптычныя. Інш. віды біяэлектрычных патэнцыялаў розных органаў і тканак — аналагі або вытворныя асноўных.

Мембранны патэнцыял — рознасць патэнцыялаў паміж вонкавым і ўнутр. бакамі мембраны жывой клеткі. Абумоўлены нераўнамерным размеркаваннем іонаў (у першую чаргу іонаў натрыю і калію) паміж унутр. саставам клеткі і асяроддзем вакол клеткі. Унутр. частка мембраны ў спакоі зараджана адмоўна, вонкавая — дадатна. Патэнцыял дзеяння характэрны для спецыялізаваных узбуджальных утварэнняў, паказчык развіцця працэсу ўзбуджэння. Забяспечвае, напр., распаўсюджванне ўзбуджэння ад рэцэптараў да нерв. клетак і далей ад клетак да мышцаў, залоз, тканак У мышачным валакне садзейнічае сувязі фіз.-хім. і ферментатыўных рэакцый, якія закладзены ў аснову скарачэння мышцаў. Постсінаптычныя патэнцыялы (узбуджальны і тармазны) узнікаюць на невял. участках клетачнай мембраны. Месцы ўзнікнення градыентаў — мембраны, якія адрозніваюцца структурай і іонаабменнай уласцівасцю. Асноўная крыніца энергіі — адэназінтрыфосфарная кіслата (АТФ). Біяэлектрычныя патэнцыялы інфармуюць аб стане і дзейнасці розных органаў. Іх рэгіструюць і вымяраюць пры даследаванні функцый арганізма, тканак і асобных клетак. У мед. практыцы ў дыягнастычных мэтах рэгіструюць біяэлектрычныя патэнцыялы сэрца (электракардыяграфія), мозга (эл.-энцэфалаграфія), мышцаў (эл. міяграфія) і інш.

А.​М.​Ведзянееў, У.​У.​Салтанаў.

т. 3, с. 182

Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)