біялагічныя палімеры, якія складаюцца з монануклеатыдаў. Абавязковы кампанент усіх жывых клетак, многіх вірусаў. Удзельнічаюць у рэалізацыі генет. інфармацыі. Першасную структуру РНК вызначае паслядоўнасць размяшчэння монануклеатыдаў у поліпептыдным ланцугу. На ўзроўні другаснай структуры малекула РНК фарміруе адзін ланцуг (асобныя ўчасткі, камплементарныя адзін аднаму, утвараюць 2 ланцугі). У фарміраванні трацічнай структуры РНК важную ролю адыгрываюць бялкі, пры гэтым узнікаюць рыбасомы, інфармасомы.
Адрозніваюць некалькі тыпаў РНК: рыбасомная (рРНК) — каля 80% клетачнай РНК, транспартная (тРНК) — 15%, матрычная або інфармацыйная (мРНК) — каля 5% усёй РНК клеткі. Гал. функцыя рРНК — структурная арг-цыя рыбасомы, дзе адбываецца зборка поліпептыднага ланцуга. Трансп. РНК актывізуе і пераносіць амінакіслоты і выконвае адаторную функцыю, якая дазваляе перакласці «мову» генет. кода (паслядоўнасць нуклеатыдаў) у «мову» структуры бялковай малекулы (амінакіслотная паслядоўнасць). Матрычная РНК — камплементарная копія генаў, якія кадзіруюць структуру бялкоў. Яна выкарыстоўваецца як матрыца пры зборцы поліпептыднага ланцуга. Асобна вылучаюць вірусную РНК. У некат. тыпаў вірусаў яна адыгрывае ролю захавальніцы генет. інфармацыі. Пранікненне такога віруса ў клеткі патрабуе папярэдняга сінтэзу дэзоксірыбануклеінавай кіслаты (ДНК) на матрыцы РНК гэтага віруса. Паток генет. інфармацыі (экспрэсія генаў) уключае транскрыпцыю — сінтэз усіх тыпаў РНК на малекуле ДНК і трансляцыю — біясінтэз бялку на мРНК (генет. інфармацыя ДНК рэалізуецца шляхам праграміраванага праз мРНК сінтэзу бялкоў, якія вызначаюць фенатыпічныя прыкметы жывых арганізмаў). Утварэнне мРНК на матрыцы ДНК у пракарыятычных клетках — адносна просты працэс і ўключае гал. чынам транскрыпцыю адпаведнага гена з дапамогай РНК-полімеразы. Біясінтэз мРНК у эўкарыётаў значна адрозніваецца шматступеньчатасцю фарміравання актыўнай малекулы. Малекулы тРНК як у эўкарыётаў, так і ў пракарыётаў сінтэзуюцца ў выглядзе вял. папярэднікаў. У клетках эўкарыётаў сінтэз рРНК лакалізаваны ў ядзерку і ажыццяўляецца РНК-полімеразай I; геном утрымлівае ад 50 да 1000 ідэнтычных копій генаў, якія кадзіруюць рРНК.
Літ.:
Березов Т.Т., Коровкин Б.Ф. Биологическая химия. 3 изд. М., 1998.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
РЭЦЭ́ПТАРЫ (ад лац. receptor той, хто прымае, атрымлівае),
у жывёл і чалавека адчувальныя ўтварэнні, якія ўспрымаюць і ператвараюць раздражненні з вонкавага і ўнутр. асяроддзя ў спецыфічную актыўнасць нерв. сістэмы. Забяспечваюць арганізм неабходнай для яго існавання інфармацыяй і прыстасаваны для ўспрымання істотных для дадзенага віду жывёлы сігналаў.
Адрозніваюць Р. ў выглядзе свабодных канцоў нерв. валокнаў, дыферэнцыраваных нерв канцоў, размешчаных у глыбіні тканак, і як ч. складаных сенсорных органаў. Большасць Р. — экстэрарэцэптары (органы слыху, зроку, нюху, смаку, дотыку), якія ўспрымаюць раздражненні з вонкавага асяроддзя. Інтэрарэцэптары сігналізуюць аб стане ўнутр. органаў (сэрца, лёгкія, лімфатычныя і крывяносныя сасуды і інш.) і апорна-рухальнага апарату (пропрыярэцэптары шкілетных мышцаў, звязак, сустаўных сумак). Адны Р. атрымліваюць інфармацыю на пэўнай адлегласці ад крыніцы раздражнення (дыстантныя), другія — толькі пры непасрэдным сутыкненні з ёй (кантактныя). У залежнасці ад віду ўспрымальнага раздражнення адрозніваюць: механарэцэптары (Р. органаў слыху і гравітацыі, тактыльныя, апорна-рухальнага апарату, барарэцэптары сардэчна-сасудзістай сістэмы і інш.); хемарэцэптары (Р. смаку і нюху, сасудзістыя і тканкавыя, адчувальныя да ўздзеяння хім. злучэнняў); фотарэцэптары (Р. органа зроку); тэрмарэцэптары (Р. скуры і ўнутр. органаў, што ўспрымаюць тэмпературныя ваганні, а таксама цэнтр. тэрмаадчувальныя нейроны); электрарэцэптары (электраадчувальныя Р. бакавой лініі). Усе Р. спецыялізаваны для рэцэпцыі адэкватных ім раздражняльнікаў. Іх функцыі ўзаемазвязаны праз ц. н. с. і з дапамогай кантактаў аднаго з адным. Дзейнасць Р. рэгулюецца ц. н. с.
У біяхіміі Р.наз. малекулы ці малекулярныя комплексы на паверхні клетак, здольныя распазнаваць спецыфічныя хім. групоўкі, малекулы ці інш. клеткі, звязваць іх і рэагаваць на ўзаемадзеянне канфармацыйнымі зменамі або перадачай сігналаў унутр. клеткі. Да рэцэптарных малекул належаць Р. гармонаў, вірусаў, таксінаў і інш.
Літ.:
Сергеев П.В., Шимановский Н.Л. Рецепторы физиологически активных веществ. М., 1987;
Внутриклеточная сигнализация. М., 1988;
Пальцев М.А., Иванов А.А. Межклеточные взаимодействия. М., 1995.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
БІЯФІ́ЗІКА (ад бія... + фізіка),
біялагічная фізіка, навука пра фіз.-хім. асновы і заканамернасці жыццядзейнасці, а таксама ультраструктуры біял. сістэм на ўсіх узроўнях арганізацыі ад субмалекулярнага да клеткі і цэлага арганізма. Падзяляецца на квантавую, малекулярную, мембранную, клетачную, біяфізіку кіравання і рэгуляцыі, біяфізіку складаных сістэм. Вылучаюць таксама біяфізіку рухомасці, узбуджальнасці, рэцэпцыі, біяэнергет., трансп. працэсаў і інш.
Біяфізіка як навука сфарміравалася ў сярэдзіне 20 ст. Першыя даследаванні біяфіз. характару вядомы з 17 ст. (працы франц. вучонага Дэкарта па вывучэнні органаў пачуццяў). У 1791 адкрыта жывёльная электрычнасць (італьян. вучоны Л.Гальвані). У 2-й пал. 19 ст.ням. вучоныя Г.Гельмгольц і В.Вунт паклалі пачатак фізіял. акустыцы і оптыцы. У Расіі развіццю біяфіз. даследаванняў спрыялі працы І.М.Сечанава (біямеханіка рухаў, канец 19 ст.), П.П.Лазарава (іонная тэорыя ўзбуджэння, 1916), Г.М.Франка і С.Ф.Радыёнава (фіз. метад выяўлення звышслабага свячэння біяаб’екта, 1950-я г.). У 1953 англ. Вучоныя Дж.Кендру і М.Перуц адкрылі структуру міяглабіну і гемаглабіну.
Станаўленне біяфізікі на Беларусі пачалося з даследаванняў М.М.Гайдукова і Ц.М.Годнева па фотасінтэзе (1924—27). Навукова-даследчыя работы па малекулярнай і мембраннай біяфізіцы вядуцца ў ін-тах АН Беларусі (фотабіялогіі, біяарган. хіміі, біяхіміі, фізікі), БДУ, Гродзенскім і Віцебскім мед. ін-тах. Высветлены прырода і інфарм. магчымасць УФ-флюарэсцэнцыі бялкоў (С.В.Конеў, Я.А.Чарніцкі), рэгуляцыя фотасінтэзу пры адаптацыі праз змяненне структурна-функцыян. стану хларапластаў (В.М.Іванчанка), раскрыты асаблівасці фатонікі малекулы хларафілу (Г.П.Гурыновіч, К.М.Салаўёў), залежнасці радыеадчувальнасці дэзоксірыбануклеапратэідаў ад колькасці міжмалекулярных кантактаў (А.М.Пісарэўскі, В.Т.Андрыянаў, С.М.Чаранкевіч), адкрыты новыя рэгулятарныя механізмы ў палачцы сятчаткі вока (І.Дз.Валатоўскі). Праведзены даследаванні па матэм. разліку канфармацыі поліпептыдаў і бялкоў (С.Г.Галакціёнаў), мембранна-структурным кантролі праліферацыі мікробных клетак (У.М.Мажуль), кааператыўных эфектах у пратэаліпасомах (П.А.Кісялёў), электрафізіялогіі расліннай клеткі (У.М.Юрын), структурнай і рэцэпторнай рэарганізацыі мембранаў мозга пры старэнні (С.Л.Аксёнцаў і А.А.Мілюцін).
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
ПІ́НСКА-ІВАЦЭ́ВІЦКІ СТРОЙ,
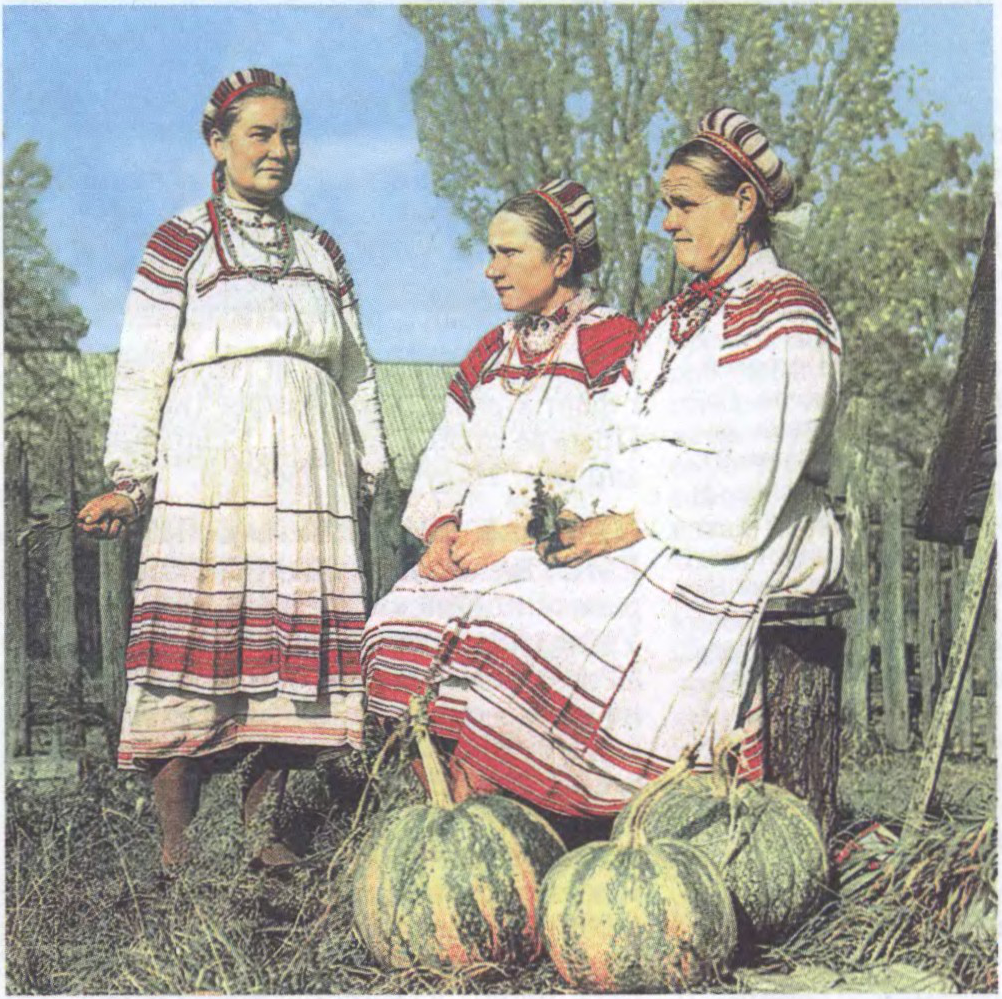
традыцыйны комплекс бел.нар. адзення Зах. Палесся. Бытаваў у 19 — сярэдзіне 20 ст. ў Бярозаўскім, Ганцавіцкім, Драгічынскім, Івацэвіцкім, Пінскім р-нах Брэсцкай вобл. Яму ўласцівы серабрыста-белая каларыстычная гама, стрыманае аздабленне натыканнем, вышыўкай і карункамі, якія падкрэслівалі чысціню тонкага накрухмаленага палатна. Жаночы летні гарнітур існаваў у 2 варыянтах: кашуля, спадніца-андарак, фартух, кабат (неабавязковая частка гарнітура), намітка; спадніца-палатнянік, кашуля (потым блуза), фартух, чапец з хусткай. Кашулю кроілі з прамымі плечавымі ўстаўкамі, прышытымі па ўтку, з адкладным або стаячым каўняром. Арнамент — гладкія пункцірныя ў выглядзе шахматнага поля вузкія пасачкі чырвонага, чырвона-чорнага натыкання на рукавах, грудзях і плечавых устаўках. Фартух шылі з 1 полкі, кроенай на ўтку або з 3(4) полак, кроеных па аснове, аздаблялі паліхромнай расліннай арнаментыкай, карункамі. Гладкія пункцірныя лініі арнаменту размяшчаліся паралельна лініі нізу або краёў бакавіц, утвараючы малюнак палос ці клетак з буйным рапортам. Андарак кроілі з 4 полак аднатоннай ці ў паскі баваўнянай тканіны чырв., фіялетава-сіняга колераў; спадніцу — з белага палатна, падол яе аздаблялі чырвонымі вузкімі паскамі натыкання. Кабат выраблялі з даматканага цёмна-карычневага (радзей сівога) прываленага сукна; кроілі без рукавоў (накшталт гарсэта) і з рукавамі (накшталт курты). Галаўныя ўборы жанчын — намітка, аздобленая жывымі або штучнымі кветкамі, чапец, ажурна выплецены з ільняных ці баваўняных белых нітак (завязваўся на саламяную каробачку ці тканку), белая хустка з паліхромнай вышыўкай на адным рагу.
Мужчынскую кашулю кроілі з плечавымі ўстаўкамі, падпяразвалі шырокім плеценым поясам-ручніком чырвона-бурачковага колеру з мноствам дробных кутасікаў на канцах. Летам насілі саламяныя брылі, абвязаныя паверху ўзорыстай тасьмой, зімой — круглыя шапкі з шэрага ці блакітнага сукна і з чорным аўчынным аколышам. Дапаўнялася мужчынскае адзенне скураною кайстрачкай-калітой (насілі на раменьчыку цераз плячо або падвешвалі да пояса), скураным чэхлікам для ножыка.
Літ.:
Раманюк М.Ф. Беларускае народнае адзенне: [Альбом]. Мн., 1981.
М.Ф.Раманюк.
Да арт.Пінска-Івацэвіцкі строй. Жанчыны ў традыцыйным адзенні з чапцамі. Вёска Аброва Івацэвіцкага раёна Брэсцкай вобл. 1930-я г.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
ДРАЎНІ́НА, ксілема,
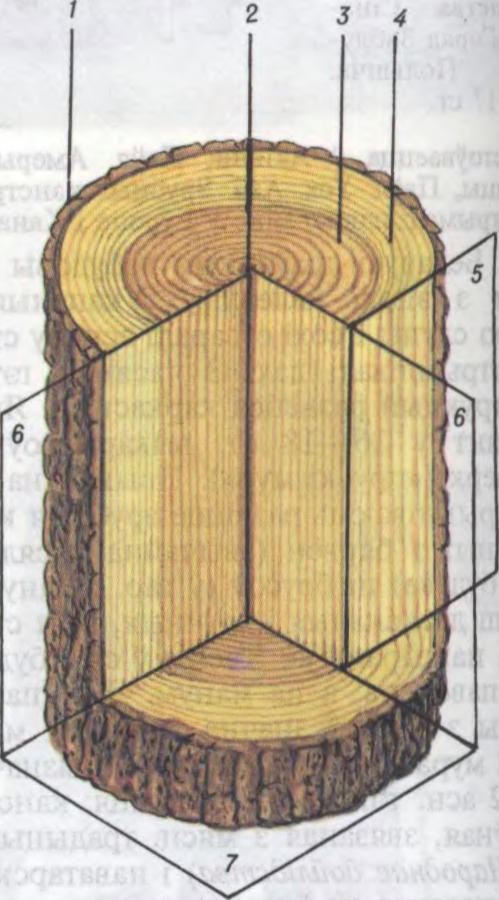
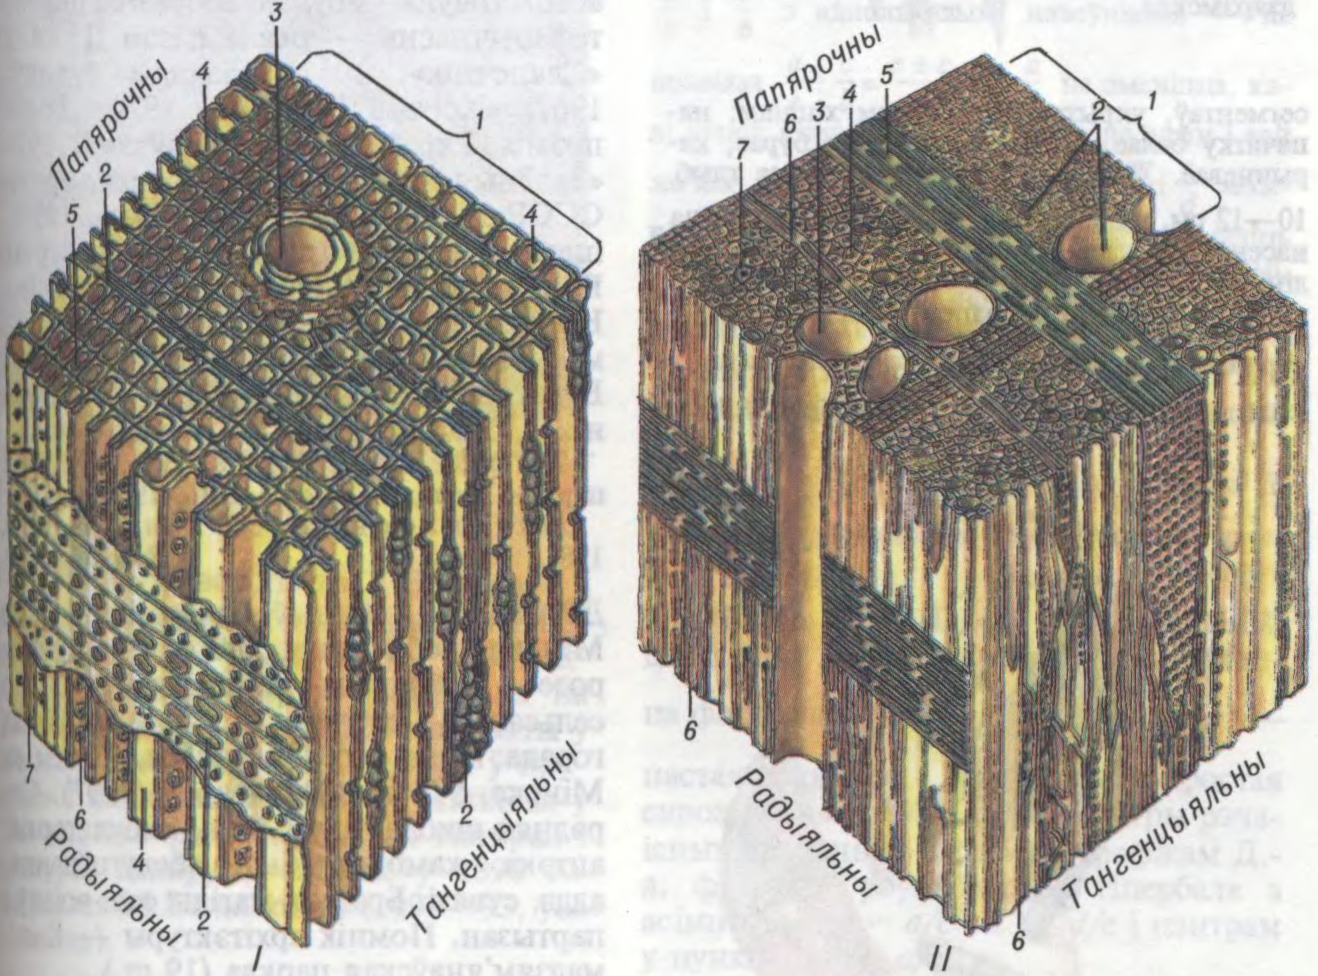
тканка раслін, складзеная з клетак з адраўнелымі абалонкамі. Надае расліне трываласць, праводзіць ваду з растворанымі ў ёй рэчывамі, з’яўляецца месцам назапашвання пажыўных рэчываў. Складае асн. масу ствала, каранёў і галін дрэвавых раслін, размешчана паміж стрыжнем і камбіем.
Гал. анат. элементы Д. — сасуды (трахеі), трахеіды, драўняныя валокны (лібрыформ) і драўняная асн. тканка (парэнхіма). Адрозніваюць Д. першасную, якая ўтварае клеткі пракамбію, і другасную (уласна Д., што ўтвараецца камбіем). Штогадовыя прыросты Д. характарызуюцца ўтварэннем гадавых слаёў (гл. таксама Гадавыя кальцы). У ядравых парод (хвоя, лістоўніца, дуб і інш.) адрозніваюць перыферычную светлую зону (абалону — фізіялагічна актыўную частку, якая праводзіць ваду і мінер. рэчывы) і цэнтр. цёмную зону (ядро, якое ўдзельнічае ў водазабеспячэнні; у клетках некат. парод назапашваюцца смолы, дубільныя рэчывы, алеі, камедзі, пігменты). У бяз’ядравых парод цэнтр. зона такога ж колеру, як абалона (елка, піхта, бяроза, клён і інш.). Элементны хім. састаў сухой Д. розных парод падобны, у ім 49—50% вугляроду, 6—7% вадароду, 43—46% кіслароду, 0,1—0,3% азоту; попелу да 1%, у яго ўваходзяць кальцый, калій, натрый, магній і інш. элементы. Д. розных парод складаецца пераважна з цэлюлозы (у хвойных 41—58%, у лісцевых 39—47%), геміцэлюлозы (адпаведна 15—23% і 20—38%), лігніну (28—34% і 17—27%). Шчыльнасць Д. мяняецца ў шырокіх межах у залежнасці ад віду раслін і ўмоў яе росту. Мікраструктура Д., якая дазваляе вызначыць яе якасць, характарызуецца шырынёй гадавых слаёў, наяўнасцю позняй Д., раўнаслойнасцю, велічынёй і размеркаваннем натуральных няроўнасцей. Д. шырока выкарыстоўваецца ў многіх галінах нар. гаспадаркі на вытв-сць цэлюлозы, кардону, паперы, буд. матэрыялаў (гл.Драўляныя канструкцыі, Драўняныя матэрыялы, Драўнянавалакністыя пліты, Драўнянаслаістыя пластыкі) і інш., а таксама на паліва. Хім. перапрацоўкай з Д. атрымліваюць дубільныя рэчывы, каніфоль, шкіпінар, флатамасла, харч. глюкозу, драўняны і вінны спірт і інш.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
ЖЫЦЦЁ,
асобая форма існавання і руху матэрыі, здольная да развіцця (эвалюцыі) і якасна больш высокая, чым фіз. і хім. формы; асн. матыў існавання і змест перажывання чалавека, жыццёвы лёс наогул. Характарызуецца абменам рэчываў, раздражняльнасцю, самааднаўленнем, сістэмным самакіраваннем, перадачай энергіі і інфармацыі, прыстасаванасцю да ўмоў асяроддзя(адаптацыяй), а таксама адноснай самастойнасцю надарганізменных утварэнняў (біягеацэнозаў, экасістэм) пры агульным фізіка-хім. адзінстве жывога рэчыва біясферы Зямлі (магчыма, і ўсяго Сусвету). Існуюць розныя канцэпцыі паходжання і сутнасці Ж. Прыхільнікі крэацыянізму прызнаюць аднаактавае стварэнне арганізмаў Богам або шматлікія акты стварэння ўсё больш дасканалых форм Ж. пасля знішчэння папярэдніх у выніку «катаклізмаў». Тэорыя самаадвольнага і спантаннага зараджэння Ж. была пашырана ў Стараж. Кітаі (Канфуцый), Вавілоне і Егіпце. Віталізм, які абапіраецца на вучэнне Арыстоцеля аб энтэлехіі, растлумачвае працэсы Ж. дзеяннем нематэрыяльнай «энергіі душы», «жыццёвай сілы» або «жыццёвага парыву». Тэорыя біяхім. эвалюцыі прапануе сваю ўсеагульную схему ўзнікнення Ж. ў выніку працяглых пераўтварэнняў вугляродазмяшчальных злучэнняў, пераходу ад складаных арган. рэчываў да простых жывых арганізмаў; паводле палеанталагічных звестак, першыя жывыя арганізмы (аднаклетачныя) з’явіліся на Зямлі не менш як 3,5—3,8 млрд. гадоў назад. На глебе метафізічнага матэрыялізму распрацоўваліся канцэпцыі пра занясенне зародкаў жыцця на Зямлю з космасу (панспермія) і аб спрадвечным паралельным існаванні жывой і нежывой матэрыі. Франц. філосаф А.Бергсон разглядаў Ж. як працэс чалавечага быцця і ўяўляў яго ў форме зыходнага «ўзрыву», які прывёў да разгортвання жыццёвага працэсу; пры гэтым у якасці 2 асн. форм Ж. і пазнання ён вылучаў інтэлект і інтуіцыю. З псіхааналітычнага пункту погляду Ж. ўяўляе сабой узаемадзеянне структурных элементаў псіхікі, жыццядзейнасці індывіда і асаблівасцей навакольнага асяроддзя. На думку З.Фрэйда і Л.Шапенгаўэра А.Шапенгаўэра, «сапраўдным вынікам» і мэтай Ж. з’яўляецца дасягненне смерці, а сексуальныя схільнасці, якія ўзнаўляюць папярэднія станы праз зліццё дзвюх зародкавых клетак, ёсць увасабленне волі да Ж. Ідэі аб Ж. як рэдкай разнавіднасці смерці ляжаць у аснове канцэпцыі постструктуралізму, прадстаўнікі якога не проціпастаўляюць Ж. смерці, а ўводзяць іх у адносіны невырашальнай узаемаабарачальнасці. Гл. таксама Абіягенез, Гамеастаз, Дарвінізм, Філасофія жыцця.
Літ.:
Вернадский В.И. Живое вещество. М., 1978;
Фролов И.Т. О смысле жизни, о смерти и бессмертии человека. М., 1985;
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
БІЯСІ́НТЭЗ (ад бія... + сінтэз),
утварэнне ў жывых арганізмах складаных арган. рэчываў з больш простых злучэнняў пры ўдзеле ферментаў. Гал. функцыі біясінтэзу — ажыццяўленне актыўнага абмену рэчываў, утварэнне і аднаўленне структурных частак клетак і тканак (гл.Анабалізм), што цесна звязана з адначасовым процілеглым працэсам расшчаплення складаных арган. рэчываў на больш простыя (гл.Катабалізм), якія з’яўляюцца крыніцай «будаўнічага матэрыялу» і энергіі для біясінтэзу. У выніку біясінтэзу павялічваюцца памеры малекул, ускладняецца іх структура і павышаецца энергет. патэнцыял.
Пачатковыя пастаўшчыкі энергіі для біясінтэзу — зялёныя расліны і фотасінтэзавальныя бактэрыі, што акумулююць сонечную энергію (гл.Фотасінтэз), а таксама некаторыя інш. бактэрыі, якія выкарыстоўваюць энергію акіслення неарган. злучэнняў (гл.Хемасінтэз). З дапамогай гэтай энергіі аўтатрофныя і хематрофныя арганізмы здольны сінтэзаваць простыя арган. рэчывы з неарган. (гл.Асіміляцыя). Усе іншыя (гетэратрофныя) арганізмы выкарыстоўваюць гатовыя арган. рэчывы як матэрыял і крыніцу энергіі для свайго біясінтэзу (гл.Акісляльнае фасфарыліраванне). Асн. крыніца энергіі для біясінтэзу — распад макраэргічных злучэнняў, пераважна адэназінтрыфосфарнай кіслаты (гл.Біяэнергетыка). Для біясінтэзу некаторых клетачных кампанентаў патрабуюцца таксама багатыя энергіяй атамы вадароду, донарам якіх з’яўляецца нікацінамідадэніндынуклеатыдфасфат (НАДФ). У ходзе біясінтэзу кожны аднаклетачны арганізм, як і кожная клетка мнагаклетачнага арганізма, самастойна сінтэзуе рэчывы, што складаюць яго. Асноўныя з іх — полінуклеатыды (ДНК і РНК), поліцукрыды і бялкі, малекулы якіх разнастайныя па структуры і найбольш складаныя. Утварэнне палімерных арган. злучэнняў з больш простых манамераў суправаджаецца ў кожным выпадку рэакцыяй дэгідратацыі (вывядзеннем малекул вады з рэагуючых злучэнняў). Палімерызацыя адбываецца або «з галавы», або «з хваста». Калі палімерызацыя ідзе «з галавы», актываваная сувязь знаходзіцца на канцы палімеру, што бесперапынна расце, і павінна рэгенерыраваць пры кожным далучэнні манамеру. У гэтым выпадку кожны манамер прыносіць з сабой актываваную групу, якая будзе выкарыстана ў рэакцыі з наступным манамерам дадзенай паслядоўнасці. Калі палімерызацыя ідзе «з хваста», актывізаваная сувязь, якую нясе з сабой новы манамер, будзе выкарыстана для далучэння гэтага манамеру да палімернага ланцуга. Палімерызацыя полінуклеатыдаў і некаторых простых поліцукрыдаў ідзе «з хваста», бялкоў — «з галавы». Характар біясінтэзу, які адбываецца ў клетцы, вызначаецца спадчыннай інфармацыяй, што «закадзіравана» ў геноме.
Біясінтэз можа быць ажыццёўлены і ў эксперым. умовах. У прам-сці шырока выкарыстоўваецца мікрабіял. сінтэз — біясінтэз мікраарганізмамі біялагічна актыўных рэчываў (вітамінаў, некаторых гармонаў, антыбіётыкаў, амінакіслот, бялкоў і інш.). Многія інш. рэакцыі біясінтэзу ўлічваюцца або выкарыстоўваюцца ў розных галінах біятэхналогіі.
Літ.:
Биосинтез белка и нуклеиновых кислот. М., 1965;
Молекулярная биология клетки: Пер. с англ.Т. 1. 2 изд. М., 1994;
Ленинджер А. Основы биохимии: Пер. с англ.Т. 2. М., 1985.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
БЯЛКІ́, пратэіны,
прыродныя высокамалекулярныя арган. рэчывы, малекулы якіх складаюцца з астаткаў амінакіслот. Адзін з асн.хім. кампанентаў абмену рэчываў і энергіі жывых арганізмаў. Абумоўліваюць іх будову, гал. адзнакі, функцыі, разнастайнасць і адаптацыйныя магчымасці, удзельнічаюць ва ўтварэнні клетак, тканак і органаў (структурныя бялкі), у рэгуляцыі абмену рэчываў (гармоны), з’яўляюцца запасным пажыўным рэчывам (запасныя бялкі). Складаюць матэрыяльную аснову амаль усіх жыццёвых працэсаў: росту, стрававання, размнажэння, ахоўных функцый арганізма (гл.Антыцелы, Імунаглабуліны, Таксіны), утварэння генет. апарату і перадачы спадчынных прыкмет (нуклеапратэіды), пераносу ў арганізме рэчываў (транспартныя бялкі), скарачэнняў мышцаў, перадачы нерв. імпульсаў і інш.; ферменты бялковай прыроды выконваюць у арганізме спецыфічныя каталітычныя функцыі, выключна важнае значэнне ў рэгуляцыі фізіял. працэсаў маюць бялкі.-гармоны. Сінтэзуюцца бялкі з неарган. рэчываў раслінамі і некат. бактэрыямі. Жывёлы і чалавек атрымліваюць гатовыя бялкі з ежы. З прадуктаў іх расшчаплення (пептыдаў і амінакіслот) у арганізме сінтэзуюцца спецыфічныя ўласныя бялкі, дзе яны няспынна разбураюцца і замяняюцца зноў сінтэзаванымі. Біясінтэз бялкоў ажыццяўляецца па матрычным прынцыпе з удзелам ДНК, РНК, пераважна ў рыбасомах клетак і інш. Паслядоўнасць амінакіслот у бялках адлюстроўвае паслядоўнасць нуклеатыдаў у нуклеінавых к-тах. Паводле паходжання і крыніц атрымання бялкоў падзяляюцца на раслінныя, жывёльныя і бактэрыяльныя, паводле хім. саставу — на простыя (некан’югіраваныя) — пратэіны і складаныя (кан’югіраваныя) — пратэіды. Простыя складаюцца з астаткаў амінакіслот, што злучаны паміж сабою пептыднай сувяззю (—NH—CO) у доўгія ланцугі — поліпептыды, складаныя — з простага бялку, злучанага з небялковым арган. ці неарган. кампанентам непептыднай прыроды, т.зв.прастэтычнай групай, далучанай да поліпептыднай часткі. Сярод складаных бялкоў паводле тыпу прастэтычнай групы вылучаюць нуклеапратэіды, фосфапратэіды, глікапратэіды, металапратэіды, гемапратэіды, флавапратэіды, ліпапратэіды і інш. У састаў бялкоў уваходзіць ад 50 да 6000 і больш астаткаў 20 амінакіслот, што ўтвараюць складаныя поліпептыдныя ланцугі. Амінакіслотны састаў розных бялкоў неаднолькавы і з’яўляецца іх важнейшай характарыстыкай, а таксама мерай харч. каштоўнасці. Паслядоўнасць амінакіслот у кожным бялку вызначаецца паслядоўнасцю монануклеатыдных буд. блокаў у асобных адрэзках малекулы ДНК. Вядома амінакіслотная паслядоўнасць некалькіх соцень бялкоў (напр., адрэнакортыкатропнага гармону чалавека, рыбануклеазы, цытахромаў, гемаглабіну і інш.). Парушэнні амінакіслотнай паслядоўнасці ў малекуле бялку выклікаюць т.зв.малекулярныя хваробы. Амінакіслотную паслядоўнасць поліпептыднага ланцуга для малекулы гармону інсуліну ўстанавіў англ. біяхімік Ф.Сэнгер (1953). Звесткі пра колькасць адрозненняў у амінакіслотных паслядоўнасцях гамалагічных бялкоў, узятых з розных відаў арганізмаў, выкарыстоўваюць пры складанні эвалюцыйных картаў, якія адлюстроўваюць паслядоўныя этапы ўзнікнення і развіцця пэўных відаў арганізмаў у працэсе эвалюцыі.
Агульны хім. састаў бялкоў (у % у пераліку на сухое рэчыва): C — 50—55, O — 21—23, N — 15—18, H — 6—7,5, S — 0,3—2,5, P — 1—2, і інш. Малекулярная маса ад 5 тыс. да 10 млн. Большасць бялкоў раствараецца ў вадзе і ўтварае малекулярныя растворы. Па форме малекул адрозніваюць бялкі фібрылярныя (ніткападобныя) і глабулярныя (згорнутыя ў кампактную структуру сферычнай формы); па растваральнасці ў вадзе, растворах нейтральных соляў, шчолачах, кіслотах і арган. растваральніках вылучаюць альбуміны, гістоны, глабуліны, глютэліны, праламіны, пратаміны і пратэіноіды. Бялкі маюць кіслыя карбаксільныя і амінныя групы, таму ў растворах яны амфатэрныя (маюць уласцівасці асноў і к-т). Пры гідролізе яны распадаюцца да амінакіслот; пад уплывам розных фактараў здольныя да дэнатурацыі і каагуляцыі, уступаюць у рэакцыі акіслення, аднаўлення, нітравання і інш. Пры пэўных значэннях pH у растворах бялкоў пераважае дысацыяцыя тых ці інш. груп, што надае ім адпаведны зарад і выклікае рух у электрычным полі — электрафарэз. Структура бялкоў характарызуецца амінакіслотным саставам, парадкам чаргавання амінакіслотных астаткаў у поліпептыдных ланцугах, іх даўжынёй і размеркаваннем у прасторы. Адрозніваюць 4 парадкі (узроўні) структуры бялкоў: першасную (лінейная паслядоўнасць амінакіслотных астаткаў у поліпептыдным ланцугу), другасную (прасторавая, найчасцей спіральная прасторавая канфігурацыя, якую прымае сам поліпептыдны ланцуг), трацічную (трохмерная канфігурацыя, якія ўзнікае ў выніку складвання або закручвання структур другаснага парадку ў больш кампактную глабулярную форму) і чацвярцічную (злучэнне некалькіх частак з трацічнай структурай у адну больш буйную комплексную праз некавалентныя сувязі). Найб. устойлівая першасная структура бялкоў, іншыя лёгка разбураюцца пры павышэнні т-ры, рэзкім змяненні pH асяроддзя і інш. уздзеяннях (дэнатурацыя бялкоў), што вядзе да страты асн.біял. уласцівасцяў. Фарміраванне прасторавай канфігурацыі малекул бялку вызначаецца наяўнасцю ў поліпептыдных ланцугах вадародных, дысульфідных, эфірных і салявых сувязяў, сіл Ван дэр Ваальса і інш. Уласцівасці бялкоў залежаць ад іх хім. будовы і прасторавай арганізацыі (канфармацыі). Наяўнасць некалькіх узроўняў арганізацыі Б. забяспечвае іх вял. разнастайнасць у прыродзе (напр., у клетках бактэрыі Escherichia coli каля 3000 розных бялкоў, у арганізме чалавека больш за 50 000). Кожны від арганізмаў мае ўласцівы толькі яму набор бялкоў, па якім ён можа быць індэнтыфікаваны. Органы і тканкі жывых арганізмаў маюць розную колькасць бялкоў (у % да сырой вагі); 6,5—8,5 у крыві, 7—9 у мозгу, 16—18 у сэрцы, 18—23 у мышцах, 10—20 у насенні злакаў, 20—40 у насенні бабовых, 1—3 у лісці большасці раслін. Па харч. каштоўнасці бялкі падзяляюць на паўнацэнныя (маюць усе амінакіслоты, неабходныя жывёльнаму арганізму для сінтэзу бялкоў сваіх тканак) і непаўнацэнныя (у складзе малекул няма некаторых амінакіслот). Сутачная патрэба дарослага чалавека ў бялках 100—120 г. Арганізм расходуе ўласныя бялкі, калі ў ежы іх менш за норму. Многія прыродныя бялкі і бялковыя ўтварэнні выкарыстоўваюць у прам-сці (напр., для вырабу скуры, шэрсці, натуральнага шоўку, казеіну, пластмасаў і інш.), медыцыне і ветэрынарыі (як лек. сродкі і біястымулятары, напр., інсулін пры цукр. дыябеце, сываратачны альбумін як заменнік крыві, гама-глабулін для прафілактыкі інфекц. захворванняў, бялкі-ферменты для лячэння парушэнняў абмену рэчываў, гідралізатары бялкоў для штучнага жыўлення). Для атрымання пажыўных і кармавых бялкоў выкарыстоўваюць мікрабіял. сінтэз. Вядуцца даследаванні па штучным сінтэзе бялковых малекул (штучна сінтэзаваны фермент рыбануклеаза і інш.). Бялкі — адзін з гал. аб’ектаў даследаванняў біяхіміі, імуналогіі і інш. раздзелаў біял. навукі.
Літ.:
Бохински Р. Современные воззрения в биохимии: Пер. с англ.М., 1987;
Ленинджер А. Основы биохимии: Пер. с англ.Т. 1—3. М., 1985;
Гершкович А.А. От структуры к синтезу белка. Киев, 1989;
Овчинников Ю.А. Химия жизни: Избр. тр.М., 1990.
У.М.Рашэтнікаў.
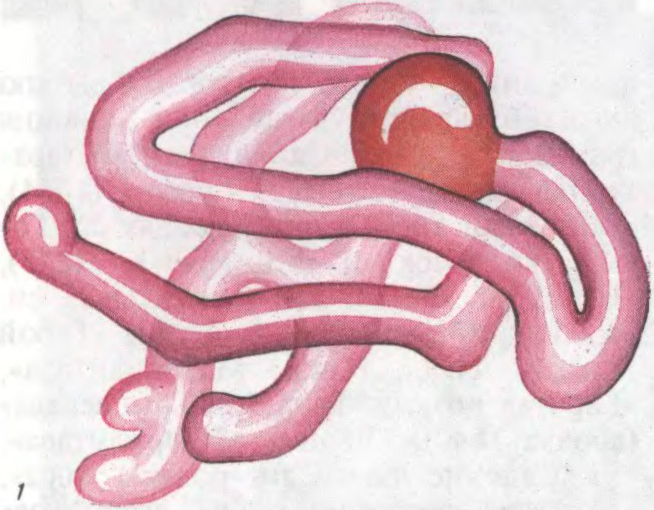
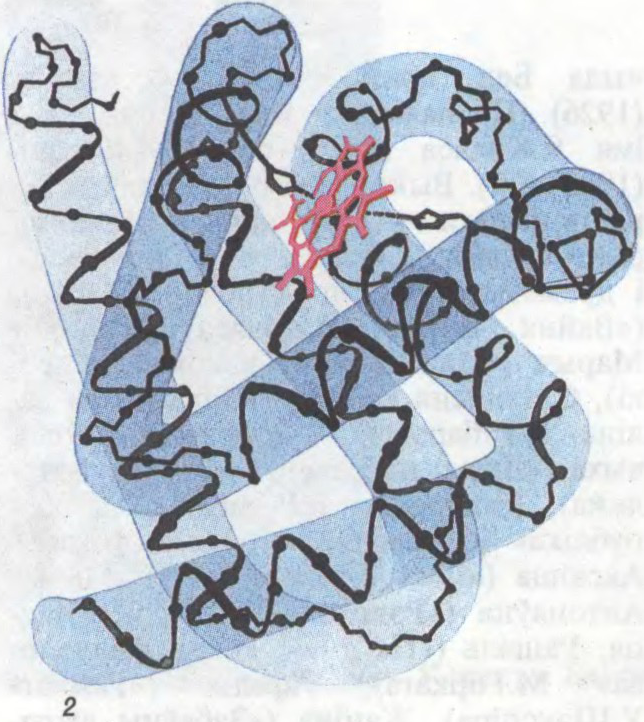
Да арт.Бялкі. Малекула бялку міяглабіну: 1 — агульны выгляд; 2 — структурная схема.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
БІЯХІ́МІЯ (ад бія... + хімія),
біялагічная хімія, навука, якая вывучае хім. састаў арганізмаў і хім. працэсы, звязаныя з іх жыццядзейнасцю. Адрозніваюць статычную біяхімію, якая займаецца пераважна аналізам хім. саставу арганізмаў і цесна ўзаемазвязана з біяарганічнай хіміяй і малекулярнай біялогіяй, дынамічную біяхімію, што даследуе працэсы ператварэння рэчываў у арганізме, і функцыянальную біяхімію, якая высвятляе сувязь паміж хім. ператварэннямі малекул і функцыяй клеткі ці органа (механізмы сакрэцыі, мышачнае скарачэнне, перадача спадчынных уласцівасцяў і інш.), а таксама механізмы рэгуляцыі працэсаў жыццядзейнасці. Паводле аб’ектаў даследавання адрозніваюць біяхімію мікраарганізмаў, раслін, жывёл і чалавека. Шэраг раздзелаў біяхіміі вылучаюць у асобныя навук. дысцыпліны: біяхімія вітамінаў, гармонаў, клінічная біяхімія і інш. Асобна ідуць параўнальная і эвалюцыйная біяхімія, якія займаюцца вывучэннем узаемасувязі паміж рознымі жывымі арганізмамі на малекулярным узроўні.
Як асобная навука біяхімія сфарміравалася ў 19 ст. Гісторыя развіцця біяхіміі бярэ пачатак ад аграхімікаў (ням. ўрач і прыродазнавец Парацэльс, 16 ст., і інш.), якія разглядалі жыццядзейнасць чалавека з пазіцый хіміі, увялі ў практыку лячэння шэраг хім. прэпаратаў. У пач. 19 ст. праведзены даследаванні па вывучэнні хім. саставу раслінных і жывёльных клетак, у 1828 сінтэзавана мачавіна (ням. хімік Ф.Вёлер), у 1842 у Германіі выдадзены першы падручнік па біяхіміі (І.Зіман). Ва ун-тах Еўропы, Расіі (Казань, А.Я.Данілеўскі, 1863) адкрыты кафедры біяхіміі. У 2-й пал. 19 ст. назапашаны некаторыя звесткі пра састаў і хім. пераўтварэнні бялкоў, тлушчу і вугляводаў, працэс браджэння (ням. вучоныя Ю.Лібіх, Э.Бухнер, франц. Л.Пастэр), фотасінтэз (К.А.Ціміразеў). Вял. ўклад у развіццё біяхіміі ў Расіі зрабілі М.В.Ненцкі, адзін з заснавальнікаў тэорыі біясінтэзу мачавіны ў арганізме млекакормячых, Я.С.Лондан (распрацаваў метады ангіястаміі і арганастаміі для прыжыццёвага даследавання абменных працэсаў на цэлым арганізме), У.І.Паладзін і Дз.М.Пранішнікаў (вывучалі абмен азоту ў раслінах), А.М.Бах (заснавальнік школы рус. біяхімікаў; даследаваў хімізм фотасінтэзу і акісляльныя працэсы ў клетцы) і інш.
На Беларусі біяхім. даследаванні праводзяцца з канца 19 ст. Цяпер вядуцца ў біял. ін-тах АН Беларусі, НДІмед. і с.-г. профілю, на адпаведных кафедрах і ў навук. цэнтрах ВНУ. Найб. вядомы працы па біяхіміі фотасінтэзу (Ц.М.Годнеў, А.А.Шлык, А.С.Вечар), глебавых ферментаў (В.Ф.Купрэвіч), біяхіміі мікраэлементаў (В.А.Лявонаў, Ф.Я.Беранштэйн), вітамінаў (Ю.М.Астроўскі), біяхіміі біял. мембранаў (С.В.Конеў), па патахіміі (М.Ф.Меражынскі), біяхіміі апрамененага арганізма (Л.С.Чаркасава). Даследуюцца біяхім. працэсы ў тканках, асобныя праблемы тэхн. біяхіміі, малекулярнай біяхіміі, біяэнергетыкі; вывучаюцца лакалізацыя і ператварэнне рэчываў у клетках і тканках, сувязь паміж будовай біяпалімераў і інш. біялагічна актыўных прыродных злучэнняў з іх функцыямі. Патрабуюць вырашэння праблемы: вывучэнне малекулярных асноў злаякаснага росту, імунітэту, малекулярных механізмаў памяці, асноў рацыянальнага харчавання чалавека і жывёл, малекулярных асноў спадчынных і саматычных захворванняў чалавека, арганізацыі і механізмаў дзейнасці генома, прынцыпаў біял. пазнавання, структуры і функцыі біял. мембранаў, праблемы ўзаемаадносін чалавека і навакольнага асяроддзя.
Літ.:
Основы биохимии: Пер. с англ.Т. 1—3. М., 1981;
Кретович В.Л. Очерки по истории биохимии в СССР. М., 1984;
Ленинджер А. Основы биохимии: Пер. с англ.Т. 1—3. М., 1985;
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
ГРЫБЫ́ (Mycota),
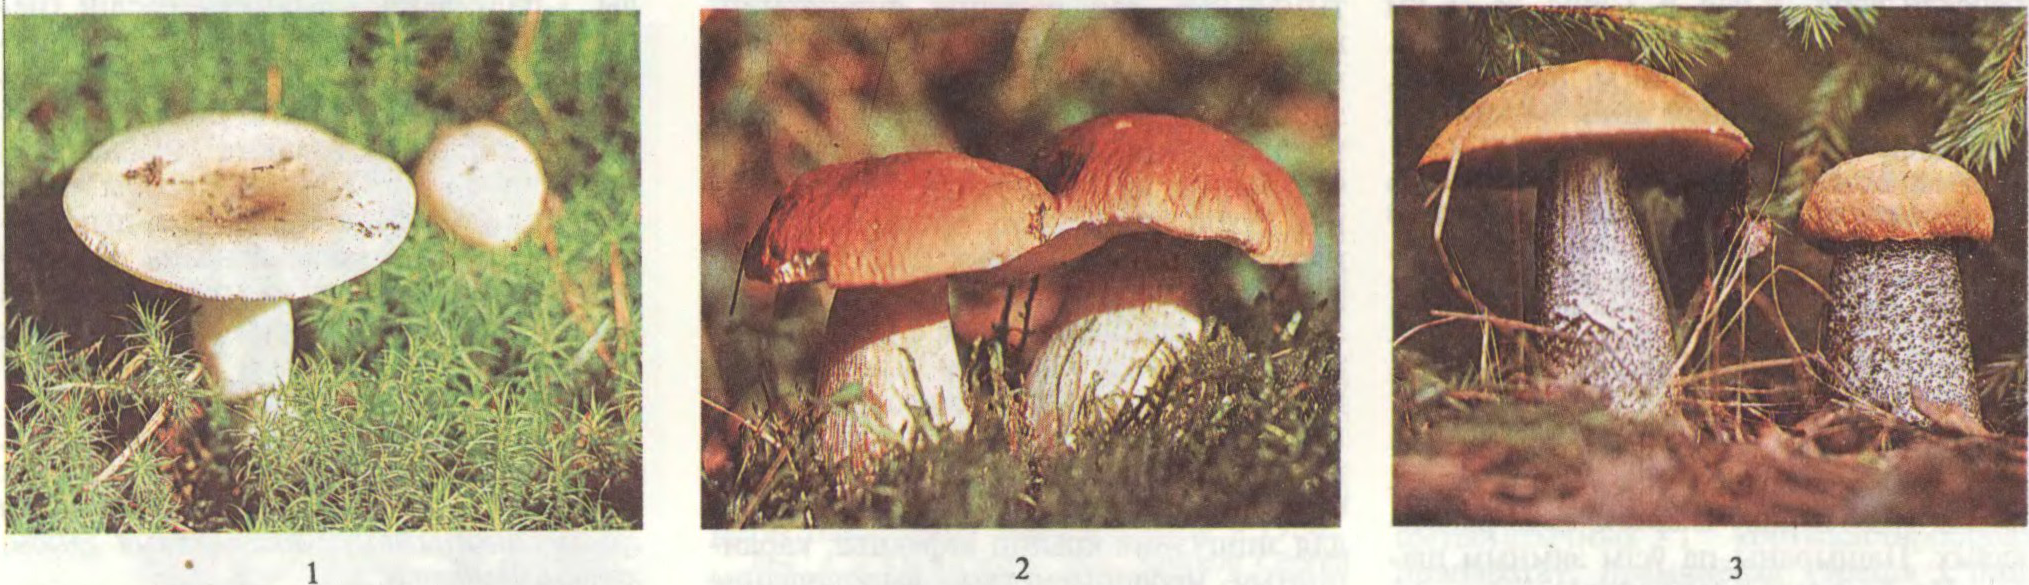
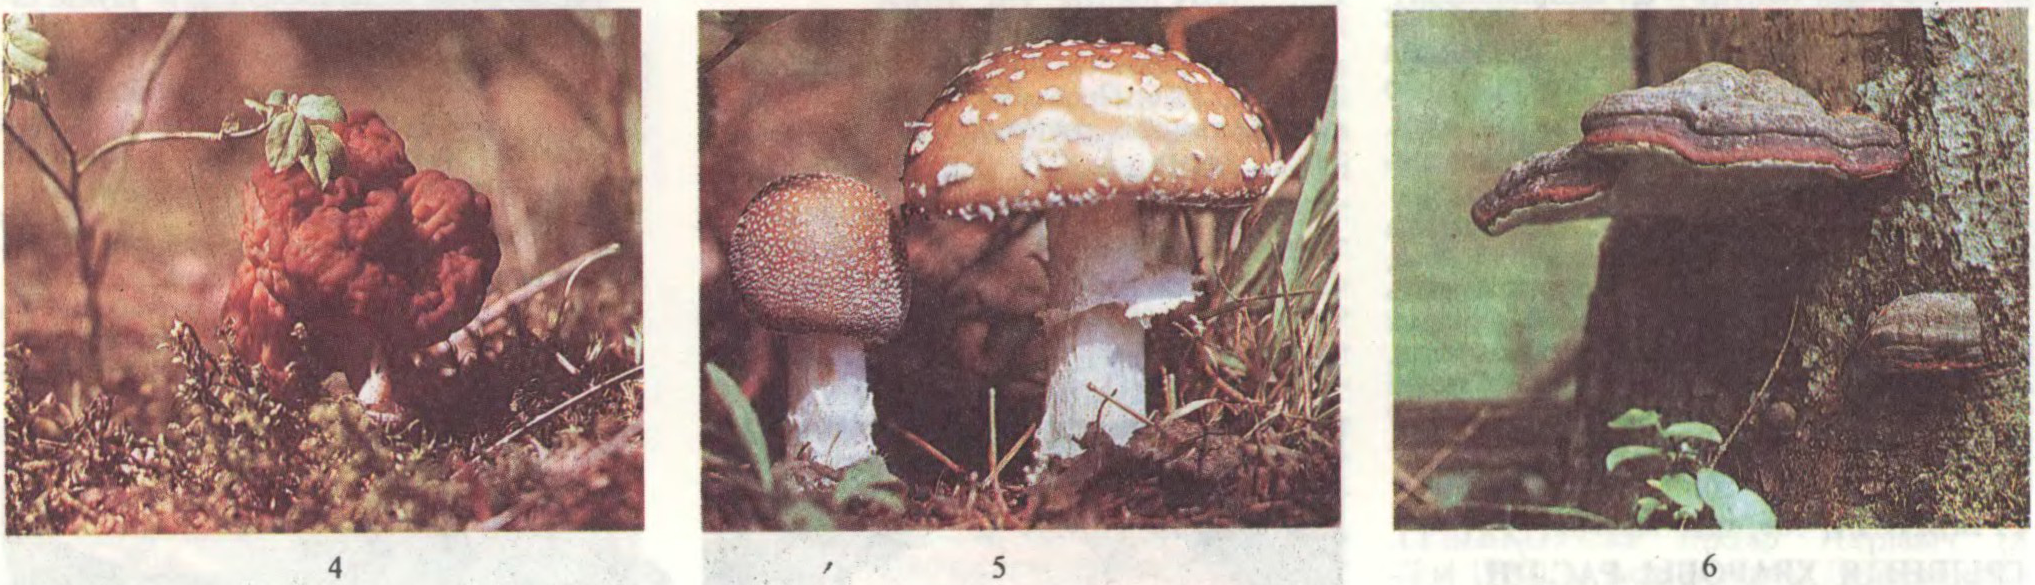
група гетэратрофных бесхларафільных арганізмаў, разнастайных паводле будовы, памераў і спосабу жыцця; адно з царстваў жывой прыроды. Спалучаюць прыкметы раслін (нерухомасць, верхавінкавы тып росту, наяўнасць клетачных сценак і інш.) і жывёл (гетэратрофны тып абмену, наяўнасць хіціну, утварэнне мачавіны і глікагену і інш.). Маюць асобы цыкл развіцця (змена ядзерных фаз, дыкарыятычны стан, разнаякаснасць ядзер у межах адной клеткі — гетэракарыёз і інш.). Раней грыбы адносілі да ніжэйшых раслін. Вядома больш за 100 тыс. відаў грыбоў, пашыраных па ўсім зямным шары. Падзяляюцца на 3 аддзелы: ааміцэты, слізевікі і сапраўдныя грыбы. Сярод апошніх вылучаюць аскаміцэты, базідыяльныя грыбы, зігаміцэты, недасканалыя грыбы, хітрыдыяміцэты.
Вегетатыўнае цела большасці грыбоў уяўляе сабой міцэлій (грыбніцу), які складаецца з адна- ці шматклетачных разгалінаваных тонкіх ніцей — гіфаў, што ў працэсе развіцця ўтвараюць строму або пладовыя целы рознай марфалогіі. Арганізмы ніжэйшых грыбоў (слізевікі, хітрыдыяміцэты) прадстаўлены голымі плазмодыямі. У жыццёвым цыкле грыбоў магчымы розныя стадыі развіцця (плеямарфізм). Аднаклетачны стан назіраецца ў перыяд размнажэння грыбоў (напр., у спор). Грыбы размнажаюцца вегетатыўным, бясполым і палавым спосабамі. У аснову вызначэння сістэматычнага стану грыбоў пакладзены асаблівасці будовы грыбнога цела, палавога і бясполага споранашэння і формы пладовых цел. Вегетатыўнае размнажэнне ажыццяўляецца кавалкамі міцэлію (шапкавыя грыбы), пачкаваннем (дрожджы), асобнымі клеткамі — аідыямі (галасумчатыя), гемамі і хламідаспорамі (галаўнёвыя грыбы), бясполае — з дапамогай спор, што ўтвараюцца на асобных клетках міцэлію. Споры могуць фарміравацца эндагенна, унутры шарападобна пукатых канцоў гіфаў (спарангіяспоры, зааспоры; у ніжэйшых грыбоў) або экзагенна (канідыяспоры; у вышэйшых і некат. ніжэйшых грыбоў). Для палавога размнажэння ўласціва зліццё аднолькавых або розных паводле памераў гамет (у ніжэйшых грыбоў), яйцаклеткі і сперматазоіда (у ааміцэтаў), вегетатыўных клетак з аднолькавымі або рознымі палавымі знакамі (у зігаміцэтаў), антэрыдыю і архікарпа з утварэннем сумкі (у аскаміцэтаў) або шляхам саматагаміі з утварэннем базідый (у базідыяміцэтаў). Утварэнню сумак і базідый звычайна папярэднічае развіццё на міцэліі пладовых цел — спец. спараносных органаў. У аскаміцэтаў гэта клейстатэцый, перытэцый, апатэцый і інш., у базідыяльных грыбоў распасцёртыя, палачка-, куста-, шара-, зоркападобныя і інш. пладовыя целы.
У прыродна-кліматычных зонах Беларусі трапляюцца прадстаўнікі ўсіх сістэматычных груп грыбоў, якія спецыялізаваны да розных экалагічных умоў існавання. Напр., агарыкальныя, афілафаральныя, гастэраміцэты і інш. сапрабіёнты развіваюцца ў лясах на гнілой драўніне, лясным подсціле, плесневыя грыбы — на прадуктах харчавання, кармах жывёл. Мучніста-расяныя грыбы, іржаўныя, перанаспоравыя, хітрыдыевыя, гельмінтаспорый, фузарый, фітафтора, макраспорый, склератынія і інш. групы фітапатагенных грыбоў паразітуюць на збожжавых, агароднінных, пладова-ягадных культурах. Вядома больш за 200 відаў ядомых грыбоў і каля 40 відаў ядавітых грыбоў. Грыбы мінералізуюць раслінныя рэшткі ў глебе, патагенныя грыбы выклікаюць хваробы раслін, жывёл і чалавека. Грыбы — актыўныя накапляльнікі радыенуклідаў. Многія віды плесневых грыбоў выкарыстоўваюць у мікрабіял. прам-сці для атрымання вітамінаў, антыбіётыкаў, ферментаў, стэроідных гармонаў, дрожджы — у хлебапячэнні, піваварэнні, вінаробстве. Шэраг відаў грыбоў культывуюць (шампіньёны, вешанкі, труфелі). Вывучае грыбы мікалогія.
Літ.:
Беккер З.Э. Физиология грибов и их практическое использование. М., 1963;
Эволюция и систематика грибов: Теорет. и прикладные аспекты. Л., 1984;