крыніца эл.-магн. хваль, прынцып дзеяння якой заснаваны на выкарыстанні з’явы вымушанага выпрамянення. К.г., што працуюць у радыёдыяпазоне спектра, наз.мазерамі, у аптычным дыяпазоне (інфрачырвоным, бачным, ультрафіялетавым) — лазерамі. Выкарыстоўваюцца ў розных галінах навукі, тэхнікі, медыцыны.
Асн элементы К.г.: актыўнае рэчыва, крыніца ўзбуджэння (пампоўка) і аб’ёмны рэзанатар. Пампоўка, якая ажыццяўляецца аптычнымі, эл. і хім. метадамі, пераводзіць актыўнае рэчыва ў інверсны стан (гл.Інверсія ў фізіцы), і яно набывае ўласцівасць узмацняць эл.-магн. выпрамяненне. Рэзанатар служыць для ўтварэння дадатнай адваротнай сувязі: частка выпрамянення з дапамогай люстэркаў вяртаецца ў актыўнае рэчыва і там зноў узмацняецца. Калі сярэдні каэфіцыент узмацнення перавышае сярэдні каэфіцыент страт рэзанатара, то ў сістэме ўзнікае генерацыя выпрамянення (напр., лазерны прамень), для якога характэрны высокая накіраванасць, кагерэнтнасць і ў большасці выпадкаў высокая монахраматычнасць. Радыяцыя К.г. можа быць неперарыўнай або ў выглядзе імпульсаў кароткай і звышкароткай (да некалькіх фемтасекунд) і адпаведна звышвялікай магутнасці (да некалькіх гігават і больш). У многіх выпадках рэжым генерацыі стацыянарны. У якасці актыўных асяроддзяў К.г. выкарыстоўваюць цвёрдыя целы (рубін, паўправаднікі), вадкасці (растворы арган. злучэнняў), газы (гл.Газавы лазер). Гл. таксама Малекулярны генератар.
Літ.:
Методы расчета оптических квантовых генераторов. Т. 1—2. Мн., 1966—68.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
КРЭМНІЙАРГАНІ́ЧНЫЯ ЗЛУЧЭ́ННІ,
рэчывы, малекулы якіх маюць атамы крэмнію (Si), злучаныя з атамам вугляроду непасрэдна або праз атам інш. элемента. Падзяляюць на манамерныя (у малекуле адзін ці некалькі атамаў Si) і высокамалекулярныя — крэмнійарганічныя палімеры.
Вядомы розныя групы К.з.: з адным атамам Si (звычайна іх разглядаюць як вытворныя сілану SiH4) — арганагалагенсіланы [напр., (CH3)3SiCl трыметылхлорсілан], алкоксісіланы [напр., (C2H5O)3SiH трыэтоксісілан], арганасіланолы [напр., (C6H5)2Si(OH)2 дыфенілсіландыол] і інш.; з некалькімі атамамі Si — арганасілаксаны ці сілаксаны [напр., (CH3)3SiOSi(CH3)3 гексаметылдысілаксан], маюць у малекуле групоўку Si—O—Si, арганасілазаны з групоўкай Si—N—Si у малекуле [напр., (CH3)3SiNHSi(CH3)3 гексаметылдысілазан] і інш.; крэмнійэлементаарганічныя злучэнні — К.з., у малекуле якіх ёсць сувязь Si—M і Si—Y—M, дзе M — атам металу ці неметалу (напр., літый, алюміній, бор, фосфар), Y — група, якая мае атам вугляроду, кіслароду, азоту, серы, злучаны з Si. Большасць К.з. — бясколерныя вадкасці; дыэлектрыкі. Раствараюцца ў арган. растваральніках, некат. (напр., арганасіланолы) — і ў вадзе. Біялагічна актыўныя рэчывы. Выкарыстоўваюць у сінтэзе крэмнійарган. палімераў, лек. сродкаў, вытв-сці крэмнійарган. вадкасцей і каўчукоў, смол і лакаў, у якасці гідрафабізатараў, антыадгезіваў, напаўняльнікаў пластмас, цепланосьбітаў (да 400 °C) і інш.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
МАЛЕКУЛЯ́РНЫЯ СПЕ́КТРЫ,
аптычныя спектры, абумоўленыя паглынаннем ці выпрамяненнем фатонаў пры квантавых пераходах малекул з адных энергет. узроўняў на другія.
Паводле складальных значэння поўнай энергіі малекулы М.с., як і квантавыя пераходы ў малекуле, падзяляюць на электронныя, вагальныя і вярчальныя. Вагальныя і вярчальныя пераходы могуць выяўляцца і ў спектрах камбінацыйнага рассеяння святла. М.с. паглынання эл.-магн. выпрамянення назіраюцца ў бачнай і ультрафіялетавай абласцях спектра (электронна-вагальна-вярчальныя спектры — сістэма палос з груп дыскрэтных ліній для найпрасцейшых малекул ці з некалькіх шырокіх бесструктурных палос у выпадку складаных малекул), у блізкай інфрачырв. вобласці (вагальна-вярчальныя спектры — шэраг структурных палос) і ў далёкай інфрачырв. вобласці (вярчальныя спектры). Вярчальны стан малекул рэалізуецца выключна ў газавай фазе, таму ў кандэнсаваным асяроддзі назіраюцца толькі электронна-вагальныя (вібронныя ці электронныя) і вагальныя спектры. Пераходы, якія адбываюцца з вылучэннем выпрамянення, утвараюць вібронныя М.с. флуарасцэнцыі і фасфарасцэнцыі. Для шматлікіх арган. малекул са складанай будовай пры пэўных умовах вібронныя спектры становяцца дыскрэтнымі, што істотна павялічвае іх інфарматыўнасць (гл.Спектраскапія). Даныя, атрыманыя пры вывучэнні М.с., дазваляюць вызначыць структуру малекул, а таксама выкарыстоўваюцца для спектральнага аналізу рэчываў.
Літ.:
Ельяшевич М.А. Атомная и молекулярная спектроскопия. М., 1962.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
МАЧАВІ́НА, карбамід,
амід вугальнай к-ты (NH2)2CO; канчатковы прадукт бялковага абмену ў большасці пазваночных жывёл і чалавека. Біясінтэз М. адбываецца ў печані (гл.Арніцінавы цыкл). З арганізма выводзіцца з мачой. М. адкрыта ў 1773 франц. хімікам І.Руэлем. Яе хім. састаў устанавіў у 1824 англ. хімік У.Праўт; сінтэзаваў у 1828 Ф.Вёлер.
Бясколернае крышт. рэчыва. Не мае паху, tпл 132,7 °C, шчыльн. 1330 кг/м³ (25 °C). Раствараецца ў вадзе, спірце, вадкім аміяку. Хімічна актыўнае злучэнне: утварае клатраты [напр., з пераксідам вадароду CO(NH2)2∙H2O2]; узаемадзейнічае са спіртамі. карбонавымі к-тамі і іх ангідрыдамі, з двухасноўнымі к-тамі (гл.Барбітуравая кіслата), анілінам, гідразінам і інш.арган. рэчывамі. Лёгка кандэнсуецца з фармальдэгідам (гл.Амінаальдэгідныя смолы). У прам-сці атрымліваюць з аміяку і дыаксіду вугляроду пры т-ры 180—230 °C пад ціскам (12—25 МПа). Выкарыстоўваюць для атрымання мачавіна-фармальдэгідных смол, фарбавальнікаў, снатворных сродкаў (веранал, люмінал і інш.), для дэпарафінізацыі нафты, у сельскай гаспадарцы як канцэнтраванае азотнае ўгнаенне (мае 46 % азоту) пад розныя с.-г. культуры на любых глебах, а таксама як заменнік пратэіну ў кармах для жвачных жывёл.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
МІКАРЫ́ЗА (ад грэч. mykēs грыб + rhiza корань),
сімбіятычнае спалучэнне сысучых каранёў вышэйшай расліны і міцэлію грыба. Вядома ў большасці наземных раслін, пераважна шматгадовых. Адрозніваюць М. эктатрофную (вонкавую), пры якой міцэлій аплятае корань і пранікае ў міжклетнікі вонкавых слаёў яго першаснай кары (каранёвыя валаскі адміраюць, карані відазмяняюцца); эндатрофную (унутраную), калі міцэлій развіваецца пераважна ў міжклетніках і клетках коравай парэнхімы кораня (корань знешне не мяняецца); эктаэндатрофную (пераходную). Эктатрофная і эктаэндатрофная (больш пашырана ў лясах) М. найб. характэрны для дрэў і шапкавых базідыяльных грыбоў (баравік, падасінавік, рыжык, мухаморы і інш.), многія з якіх без М. не ўтвараюць пладовых цел; эндатрофная — для травяністых раслін і мікраскапічных грыбоў (найб. тыповая ў недасканалых грыбоў і раслін сям. ятрышнікавых, насенне якіх не развіваецца без сімбіёзу з грыбам). Пры М. грыб атрымлівае ад расліны вугляводы, амінакіслоты і біялагічна актыўныя рэчывы, павялічвае паглынальную паверхню і функцыян. актыўнасць каранёвай сістэмы, ахоўвае яе ад пашкоджанняў і патагенаў; расліна лепш засвойвае калій, арган. азоцістыя злучэнні і фасфаты, атрымлівае ад грыба вітамінападобныя рэчывы і актыватары росту.
Мікарыза: 1 — эктатрофная (пры павелічэнні); 2 — эндатрофная (папярочны разрэз кораня клёна); 3, 4 — участак кораня хвоі з эктатрофнай мікарызай і без яе.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
МЭТАЗГО́ДНАСЦЬ,
адпаведнасць з’явы (працэсу) пэўнаму (адносна завершанаму) стану, матэрыяльная ці ідэальная мадэль якога прадстаўляецца ў якасці мэты. Спецыфічна праяўляецца ў арган. свеце, грамадскіх сістэмах, дзеяннях чалавека. Паняцце «М.» генетычна звязана з мэтамеркаваннем як сутнасным элементам чалавечай дзейнасці, які характарызуе мысліцельныя працэсы і прадметную яго дзейнасць. Дзеянні чалавека, якія адпавядаюць нейкай мэце, мэтазгодныя ў шырокім сэнсе слова. У больш вузкім сэнсе мэтазгодна такая дзейнасць, што адпавядае ўмовам дадзенага моманту і агульнаму кірунку развіцця, заснаванаму на веданні грамадскіх законаў і патрэб развіцця. М. арганічна разглядаецца як прыстасаванасць арганізмаў да ўмоў існавання, накіраванасць працэсаў развіцця жывых сістэм, якая вызначаецца ўзаемадзеяннем знешніх і ўнутр. умоў, актыўнасцю арганізмаў. Паводле Ч.Дарвіна, адносная М. жывых арганізмаў — вынік натуральнага адбору, у ходзе якога назапашваюцца і замацоўваюцца карысныя для арганізмаў адзнакі. Тэлеалогія пашырае М. на ўсю прыроду і разглядае развіццё ўсяго існуючага як ажыццяўленне загадзя прадугледжанага плана — руху да ўстаноўленай, зададзенай зверху мэты, што пацвярджаецца гарманічнай, мэтазгоднай будовай жывых арганізмаў. У кібернетыцы М. вызначаецца тым, што складаная дынамічная сістэма захоўвае сваю ўстойлівасць дзякуючы наяўнасці адваротнай сувязі — атрыманай інфармацыі пра фактычны стан дзейных органаў сістэмы, іх узаемадзеянні з навакольным асяроддзем, а не ў сілу ўсвядомленага імкнення да якой-н. мэты.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
ПРЭФАРМІ́ЗМ (ад лац. praeformo загадзя ўтвараю),
вучэнне пра наяўнасць у палавых клетках арганізмаў матэрыяльных структур, якія прадвызначаюць развіццё зародка і прыкметы арганізма, што з яго ўтвараецца. Мікраскапісты 17 ст. (А.Левенгук, М.Мальпігі і інш.) лічылі, што зародак знаходзіцца ў яйцы (авізм) або семені (анімалькулізм) у сфарміраваным стане, а ў працэсе развіцця адбываецца толькі павелічэнне ў памерах празрыстых, раней нябачных тканак (вучэнне аб прэфармацыі). У 2-й пал. 18 ст. пад уплывам даных аб парушэннях развіцця, аб спадчыннасці бацькоўскіх індывід. прыкмет, здольнасці арганізма да рэгенерацыі пачало пераважаць вучэнне аб развіцці арганізмаў як шэрагу паслядоўных новаўтварэнняў (эпігенез). У канцы 19 ст. паявілася гіпатэтычная тэорыя спадчыннасці на аснове ведаў аб індывідуальнасці храмасом і іх ролі ў працэсах апладнення і спадчыннасці, якая яшчэ мела прэфармісцкі характар. З узнікненнем генетыкі гіпотэза набыла навуковае абгрунтаванне. У сярэдзіне 20 ст. выяўленне хім. прыроды генаў, механізмаў захавання і перадачы спадчыннай інфармацыі спыніла існаванне прэфармісцкіх уяўленняў у біялогіі. Сучасная матэрыяліст. тэорыя арган. развіцця ўлічвае ролю прэфарміраваных структур (генома) і надае важнае значэнне фактарам навакольнага асяроддзя, якія спрыяюць рэалізацыі генет. інфармацыі.
Літ.:
История биологии с древнейших времен до начала XX в. М., 1972. Воронцов Н.Н. Развитие эволюционных идей в биологии. М., 1999.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
РАДЫЯЦЫ́ЙНАЯ ФІ́ЗІКАкандэнсаваных сістэм,
раздзел фізікі, які вывучае фіз. працэсы ў кандэнсаваных сістэмах (металы, паўправаднікі, дыэлектрыкі, арган. матэрыялы і інш.), абумоўленыя ўздзеяннем іанізавальнага выпрамянення (радыяцыі).
Дзеянне радыяцыі на крышталі выклікае зрушэнне атамаў са становішчаў раўнавагі ў крышталічнай рашотцы і прыводзіць да ўтварэння радыяцыйных дэфектаў. Радыяцыя змяняе ўласцівасці матэрыялаў (графіт, сталь, бетон) і прылад, якія выкарыстоўваюцца ў атамнай энергетыцы, пры асваенні касм. прасторы (напр., сонечныя батарэі) і інш.Напр., у выніку дзеяння радыяцыі на ваду ўтвараецца малекулярны вадарод і пераксід вадароду; шкло змяняе празрыстасць (афарбоўваецца), металы павялічваюць аб’ём і інш. Здольнасць кандэнсаваных сістэм захоўваць свае ўласцівасці пры ўздзеянні радыяцыі (гл.Радыяцыйная стойкасць) залежыць ад тыпу хім. сувязі іх элементаў структуры, інтэнсіўнасці і віду радыяцыі, т-ры і інш.
На Беларусі даследаванні ў галіне Р.ф. праводзяцца ў Ін-це фізікі цвёрдага цела і паўправаднікоў, Інжынерна-тэхн. цэнтры «Сосны» Нац.АН, БДУ.
Літ.:
Вавилов В.С., Кекелидзе Н.П., Смирнов Л.С. Действие излучений на полупроводники. М., 1988;
Кирсанов В.В., Суворов АЛ., Трушин Ю.В. Процессы радиационного дефектообразования в металлах. М., 1985;
Бургуэн Ж., Ланно М. Точечные дефекты в полупроводниках: Эксперимент. аспекты: Пер. с англ.М., 1985;
Бреховских С.М., Тюльнин В.А. Радиационные центры в неорганических стеклах. М., 1988.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
АКІСЛЕ́ННЕ БІЯЛАГІ́ЧНАЕ,
біяхімічны працэс, сукупнасць акісляльна-аднаўляльных рэакцый. Адбываецца ва ўсіх жывых клетках (пераважна ў мітахондрыях), складае аснову тканкавага дыхання і браджэння. Асн. функцыя акіслення біялагічнага — забеспячэнне арганізма энергіяй, якая паступова вызваляецца з арган. рэчываў пры перадачы аднаўляльных эквівалентаў (АЭ) — пратонаў і электронаў (ці толькі электронаў) ад донара да акцэптара (з прычыны рознасці іх акісляльна-аднаўляльных патэнцыялаў) і назапашваецца пераважна ў форме багатых энергіяй сувязяў адэназінтрыфосфарнай кіслаты (АТФ) і інш. макраэргічных злучэнняў. У аэробаў (большасць жывёл і раслін, многія мікраарганізмы) канчатковы акцэптар АЭ — кісларод. Пастаўшчыкі АЭ — арган. і неарган. рэчывы. Найб. значэнне мае акісленне біялагічнае, якое адбываецца пры гліколізе, акісленні α-кетаглутаравай к-ты і пры пераносе АЭ у ланцугу акісляльных (дыхальных) ферментаў (гл.Акісляльнае фасфарыліраванне). У разліку на 1 малекулу глюкозы гліколіз дае 2, акісляльнае фасфарыліраванне ў дыхальным ланцугу — 34 малекулы АТФ. У працэсе дыхання адбываецца паслядоўнае многаступеньчатае акісленне вугляводаў, тлушчаў і бялкоў, што прыводзіць да аднаўлення асн. пастаўшчыкоў АЭ для дыхальнага ланцуга, якое ў значнай ступені ажыццяўляецца ў трыкарбонавых кіслот цыкле. Мяркуюць, што гліколіз, цыкл трыкарбонавых кіслот і дыхальны ланцуг функцыянуюць у клетках усіх эўкарыётаў. Рэакцыі акіслення біялагічнага ў клетках каталізуюць аксідарэдуктазы. Акісляльныя рэакцыі, аднак, не заўсёды суправаджаюцца назапашваннем энергіі. Яны таксама нясуць функцыі пераўтварэння рэчываў (напр., пры ўтварэнні жоўцевых к-т, стэроідных гармонаў, на шляхах метабалізму амінакіслот і інш.). Акісленнем абясшкоджваюцца многія чужародныя і таксічныя для арганізма рэчывы (араматычныя злучэнні, недаакісленыя прадукты дыхання і інш.). Такое акісленне біялагічнае наз. свабодным акісленнем і суправаджаецца ўтварэннем цяпла. Мяркуюць, што сістэма пераносу электронаў, якая ажыццяўляе акісляльнае фасфарыліраванне, здольная пераключацца на свабоднае акісленне пры павелічэнні патрэбнасці ў цяпле.
Вывучэнне працэсаў акіслення ў арганізме пачалося ў 18 ст. з прац А.Лавуазье. Вял. заслуга ў даследаванні акіслення біялагічнага належыць У.І.Паладзіну (разглядаў акісленне біялагічнае як ферментацыйны працэс). Значны ўклад зрабілі таксама сав. вучоныя А.М.Бах, У.А.Энгельгарт, У.А.Беліцэр, С.Я.Севярын, У.П.Скулачоў, ням. О.Варбург, Г.Віланд, англ. Д.Кейлін, Х.Крэбс, П.Мітчэл, амер. Д.Грын, А.Ленінджэр, Б.Чанс, Э.Рэкер і інш. (лакалізацыя акіслення біялагічнага ў клетцы, сувязь з інш. працэсамі абмену рэчываў, механізмы ферментацыйных акісляльна-аднаўляльных рэакцый, акумуляцыя і пераўтварэнне энергіі і інш.). Гл. таксама Біяэнергетыка.
На Беларусі розныя аспекты акіслення біялагічнага вывучаюць у ін-тах біяарганічнай хіміі, фотабіялогіі, фізіялогіі, біяхіміі (Гродна) АН, БДУ.
Літ.:
Кривобокова С.С. Биологическое окисление: Ист. очерк М., 1971;
Ленинджер А. Основы биохимии: Пер. с англ.Т. 1—3. М., 1985;
Строев Е.А. Биологическая химия. М., 1986;
Березов Т.Т., Коровкин Б.Ф. Биологическая химия. 2 изд. М., 1990.
Беларуская Энцыклапедыя (1996—2004, правапіс да 2008 г., часткова)
АЗЁРЫ,
прыродныя вадаёмы, запоўненыя ў межах азёрнай чашы (ложа) вадой, якія не маюць непасрэднага злучэння з морам. Пл. азёр зямнога шара каля 2,7 млн.км². Найб. азёры: Каспійскае (1371 тыс.км²), Верхняе ў Паўн. Амерыцы (82,4 тыс.км²), Вікторыя ў Афрыцы (68 тыс.км²). Самае глыбокае воз. Байкал (1620 м). Размешчаны на розных вышынях: Харпа (Арпорт) у Тыбеце на выш. 4400 м, Мёртвае м. ў Зах. Азіі на 392 м ніжэй за ўзр. акіяна. У залежнасці ад умоў утварэння азёрнага ложа вылучаюць тыпы азёр: плацінныя (рачныя, далінныя і прыбярэжныя, таксама штучныя азёры-вадасховішчы); катлавінныя (карставыя, тэрмакарставыя, дэфляцыйныя, вулканічныя і тэктанічныя) і мяшанага паходжання. Паводле характару воднага балансу вызначаюць азёры сцёкавыя і бяссцёкавыя, адносна тэрмічнага рэжыму — умераныя, трапічныя і палярныя, адпаведна з хім. саставам вады — прэсныя, саланаватыя і салёныя, азёры па ступені развіцця арган. жыцця — алігатрофныя, эўтрофныя, дыстрофныя. Форма, памеры і ўзровень азёр значна мяняюцца з часам у выніку намнажэння адкладаў, змены контураў берагоў, балансу вільгаці. На Беларусі налічваецца каля 10 800 азёр. Сумарная пл. амаль 2000 км², агульны аб’ём вады 6—7 км³. Самае вял. па пл.воз.Нарач (80 км²); самае глыбокае Доўгае возера (глыб. 53,7 м). Размешчаны азёры ў асноўным на Пн (Бел. Паазер’е) і на Пд (Палессе).
Утварэнне большасці азёр Бел. Паазер’я звязана з дзейнасцю паазерскага ледавіка і яго талых водаў. Катлавіны ледавіковых азёр разнастайныя: падпрудныя (Нарач, Асвейскае, Мядзел, Лукомскае), утвораны ў выніку намнажэння талых ледавіковых водаў у паніжэннях паміж марэннымі градамі; лагчынныя (Саро, Сянно, Балдук і інш.), узніклі ад ледавіковага выворвання і эразійнай дзейнасці талых водаў; эварзійныя (Рудакова, Вісяты, Жанно), выбіты сілай ледавіковай вады, якая вадаспадам сцякала з ледавіка; тэрмакарставыя (Лісіцкае, Усомля, Канашы), утвораны ў выніку раставання пахаваных лінзаў лёду. На Палессі азёрныя катлавіны пераважна старычныя, карставыя (Вулька, Сомінскае), азёры-разлівы (Чырвонае, Олтушскае).
У водным жыўленні азёр Беларусі пераважаюць паверхневы прыток і атмасферныя ападкі, роля падземных водаў малапрыкметная. Характэрны дадатны баланс воднага жыўлення і нязначнае ваганне ўзроўню. Прыродныя ўмовы спрыяюць фарміраванню разнастайнасці расліннага і жывёльнага свету азёр.
Азёры выкарыстоўваюцца як крыніцы і збіральнікі быт. і прамысл. вады, для рыбалоўства і рыбагадоўлі, з’яўляюцца рэгулятарамі рачных і падземных водаў, назапашвальнікамі арган. сыравіны (сапрапеляў), асобныя — басейнамі-ахаладжальнікамі ДРЭС. Азёры — мясціны для адпачынку, санаторна-курортнага лячэння, турызму. Некаторыя ахоўваюцца як заказнікі: Белае ў Брэсцкай, Міжазёрны ў Віцебскай, Мазырскія яры ў Гомельскай, Свіцязянскі і Азёры ў Гродзенскай, Блакітныя азёры ў Мінскай абласцях. Вывучае азёры азёразнаўства.
В.П.Якушка.
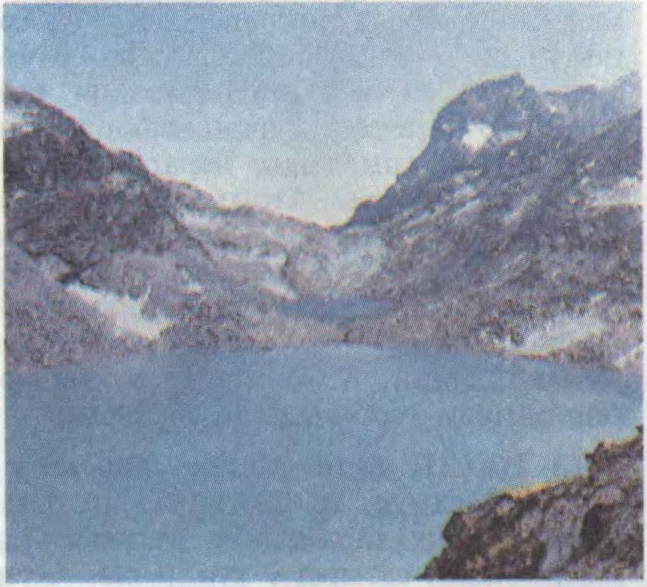
Да арт.Азёры. Возера Клухорскае на Каўказе.Да арт.Азёры. Возера ў позняй стадыі зарастання.Да арт.Азёры. Возера Воласа Паўночны ў Беларусі.Да арт.Азёры. Бабровіцкае возера ў Беларусі.